
AYT DNA’nın yapısı ve eşlenmesi konu anlatımı kapsamında nükleotitlerin kuruluşu, DNA’nın kalıtsal materyal olduğuna ilişkin deneyler, çift sarmalın moleküler düzeni ve yarı korunumlu replikasyon ayrıntılı biçimde işlenecektir.
AYT biyoloji konularının tamamına AYT konu anlatımı arşivinden ulaşabilirsiniz.
Nükleik Asitlerin Yapı Birimleri
Nükleotit, Nükleozit ve Bileşenleri
Nükleik asitler, nükleotit adı verilen monomerlerin art arda bağlanmasıyla oluşan polimerlerdir. Bir nükleotitte üç temel bileşen bulunur: azotlu organik baz, beş karbonlu şeker yani pentoz ve fosfat grubu. DNA nükleotitindeki pentoz deoksiribozdur; baz ise adenin (A), timin (T), guanin (G) veya sitozin (C) olabilir.
Baz ile pentozun glikozit bağıyla birleşmesi nükleozit oluşturur. Nükleozite fosfatın ester bağıyla katılmasıyla nükleotit meydana gelir. Bu nedenle nükleozit fosfat içermez; nükleotit içerir. Bir nükleotitteki bağlar ile DNA’nın karşılıklı zincirlerini tutan hidrojen bağları aynı değildir.

B) Deoksiriboz – fosfat – organik baz
C) Organik baz – deoksiriboz – fosfat
D) Fosfat – deoksiriboz – organik baz
E) Deoksiriboz – organik baz – fosfat
Pürin–Pirimidin Ayrımı ve DNA Nükleotitleri
Adenin ve guanin çift halkalı pürin; sitozin ve timin tek halkalı pirimidin bazlarıdır. Çift zincirli DNA’da her baz çifti bir pürin ile bir pirimidinden oluşur. Bu düzen sarmal boyunca iki şeker–fosfat omurgası arasındaki uzaklığın yaklaşık sabit kalmasına katkı sağlar.
Bir DNA molekülünde dört tür deoksiribonükleotit bulunabilir. Nükleotidin adı taşıdığı baza göre verilir; ancak adenin bazı ile adenin deoksiribonükleotidi aynı yapı değildir. Nükleotitte baza ek olarak deoksiriboz ve fosfat da bulunur.
B) Pirimidin sayısı 1180’dir ve veri DNA için uygundur.
C) Adenin sayısı kesinlikle 620’dir.
D) Guanin sayısı kesinlikle 280’dir.
E) Fosfat sayısı 620’dir.
Nükleotitlerin Bağlanması ve Polinükleotit Zinciri
Aynı DNA zincirindeki komşu nükleotitler, bir nükleotidin şekerinin 3′ karbonu ile sonraki nükleotidin fosfatı üzerinden kurulan fosfodiester bağı ile bağlanır. Böylece tekrarlayan şeker–fosfat birimleri zincirin omurgasını, bazlar ise omurgaya bağlı değişken kısmı oluşturur.
Doğrusal ve tek zincirli bir polinükleotitte n nükleotit varsa zincir içinde n − 1 fosfodiester bağlantısı bulunur. İki doğrusal zincirden oluşan ve her zincirinde n nükleotit taşıyan bir DNA parçasında ise zincir içi bağlantıların toplamı 2(n − 1)’dir. Bu sayım uçların birbirine bağlı olmadığı doğrusal DNA için geçerlidir.
B) 749
C) 750
D) 1498
E) 1500
DNA’nın Kalıtsal Materyal Olduğunu Gösteren Çalışmalar
Griffith Deneyi ve Transformasyon
Griffith, Streptococcus pneumoniae bakterisinin kapsüllü, hastalık yapan S tipi ile kapsülsüz, hastalık yapmayan R tipini kullandı. Canlı S bakterileri fareyi öldürürken canlı R bakterileri ve ısıyla öldürülmüş S bakterileri tek başına fareyi öldürmedi. Buna karşılık ısıyla öldürülmüş S ile canlı R karışımı fareyi öldürdü ve ölü fareden canlı S bakterileri elde edildi.
Bu sonuç, ölü S bakterilerinden gelen bir etkenin canlı R bakterilerine kapsül oluşturma ve hastalık yapma özelliği kazandırdığını gösterdi. Kalıtsal özelliğin hücreler arasında aktarılmasına transformasyon, aktarılan fakat Griffith’in kimliğini belirleyemediği etkene ise dönüştürücü ilke denildi. Deney, maddenin DNA olduğunu tek başına kanıtlamadı.

I. R bakterilerinin S bakterilerinden gelen kalıtsal bir etkenle değişebildiği,
II. dönüştürücü etkenin kesinlikle DNA olduğu,
III. ısıyla öldürülmüş S hücrelerinden işlevsel bir bilginin aktarılabildiği
yargılarından hangilerine ulaşılabilir?
B) Yalnız II
C) I ve III
D) II ve III
E) I, II ve III
Avery–MacLeod–McCarty Deneyi
Avery, MacLeod ve McCarty, ısıyla öldürülmüş S bakterilerinden elde edilen özütü farklı tüplerde proteaz, RNaz ve DNaz ile işledi. Proteinlerin veya RNA’nın parçalandığı örneklerde R bakterileri S tipine dönüşmeyi sürdürdü. DNA’nın parçalandığı örnekte ise dönüşüm gerçekleşmedi.
Deneyde değiştirilen temel etken, özütte hangi molekül grubunun seçici olarak parçalandığıdır. Transformasyonun yalnız DNaz uygulamasında kaybolması, dönüştürücü bilginin DNA ile taşındığını destekler. DNazın canlı R bakterilerini öldürdüğü veya kapsülü doğrudan parçaladığı biçimindeki yorumlar deney mantığına uymaz.
B) Proteaz ve RNaz bakterilerde hiçbir molekülü parçalayamaz.
C) Transformasyonu sağlayan kalıtsal bilgi DNA bütünlüğüne bağlıdır.
D) DNaz bütün R bakterilerini öldürmüştür.
E) Proteinler kalıtsal özelliklerin oluşumunda hiçbir zaman görev yapmaz.
Hershey–Chase Deneyi
Hershey ve Chase, T2 bakteriyofajlarının protein kılıfını kükürdün radyoaktif 35S izotopuyla, DNA’sını ise fosforun radyoaktif 32P izotopuyla işaretledi. Kükürt proteinlerde bulunabilirken DNA’nın yapısında yer almaz; fosfor DNA’nın fosfatlarında bulunurken proteinlerin temel yapısında yer almaz.
İşaretli fajlar bakterileri enfekte ettikten sonra karışım çalkalanıp santrifüjlendi. 32P işaretinin bakteri hücrelerinin bulunduğu çökeltiye ve yeni fajlara geçmesi; 35S işaretinin büyük ölçüde üst sıvıda kalması, bakteriye girip yeni faj üretimini yöneten maddenin DNA olduğunu gösterdi.

B) Her iki izotopun yalnız üst sıvıda bulunması
C) 32P’nin bakteri çökeltiğinde ve yeni oluşan fajlarda saptanması
D) 35S’nin DNA’nın şekerinde bulunması
E) Bakterilerin izotopsuz ortamda çoğalamaması
Çift Sarmal Modeline Giden Bulgular
Chargaff’ın farklı canlılardan elde ettiği çift zincirli DNA örneklerinde A miktarının T’ye, G miktarının C’ye yaklaşık eşit olduğunu göstermesi tamamlayıcı eşleşme için önemli bir ipucuydu. Rosalind Franklin ve Maurice Wilkins’in X ışını kırınım çalışmaları DNA’nın sarmal yapısı ve düzenli çapı hakkında yapısal veri sağladı. Watson ve Crick bu bulguları kullanarak antiparalel çift sarmal modelini geliştirdi.
Bu çalışmalar birbirinin yerine geçmez: deneysel baz oranları ve kırınım verileri yapısal kısıtları sağlarken model bu verileri tek moleküler düzende birleştirmiştir. DNA’nın kalıtsal materyal olduğunu gösteren deneylerle DNA’nın üç boyutlu yapısını açıklayan çalışmalar da farklı sorulara yanıt verir.
I. Chargaff bulguları tamamlayıcı baz oranlarına işaret eder.
II. X ışını kırınım verileri molekülün sarmal yapısı ve düzenli çapı hakkında bilgi verir.
III. Griffith deneyi zincirlerin antiparalel olduğunu doğrudan gösterir.
ifadelerinden hangileri doğrudur?
B) Yalnız III
C) I ve II
D) II ve III
E) I, II ve III
DNA’nın Moleküler Yapısı
Çift Sarmal, Şeker–Fosfat Omurgası ve Bazlar
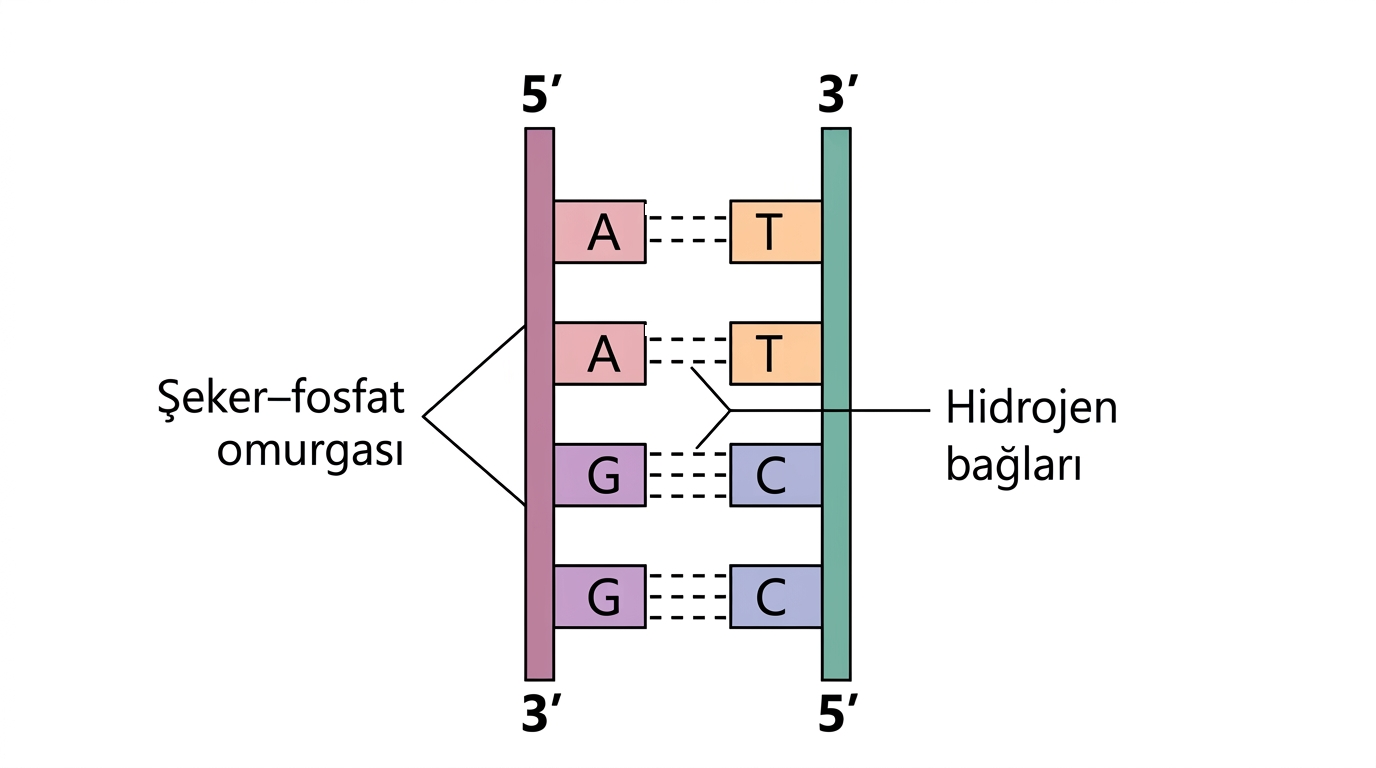
DNA, ortak bir eksen çevresinde sarmallaşan iki polinükleotit zincirinden oluşur. Hidrofilik şeker–fosfat omurgaları molekülün dışına, azotlu bazlar ise iç kısmına yönelir. Aynı zincirdeki nükleotitleri kovalent fosfodiester bağları; iki zincirdeki tamamlayıcı bazları hidrojen bağları bir arada tutar.
Kovalent omurga bağları ile bazlar arasındaki hidrojen bağlarının görevleri ayrıdır. Hidrojen bağlarının tek tek zayıf olması, eşlenme sırasında zincirlerin enzimlerle ayrılabilmesini kolaylaştırır; çok sayıda bağın birlikte bulunması ise çift sarmala kararlılık kazandırır.

B) Hidrojen bağı – fosfat
C) Glikozit bağı – organik baz
D) Ester bağı – deoksiriboz
E) Peptit bağı – fosfat
Tamamlayıcı Baz Eşleşmesi ve Chargaff İlişkileri
Çift zincirli DNA’da adenin timinle iki, guanin sitozinle üç hidrojen bağı kurar. Bu nedenle molekülün tamamında A = T ve G = C eşitlikleri; ayrıca toplam pürin = toplam pirimidin ilişkisi geçerlidir. Tek bir zincirde ise A = T veya G = C olma zorunluluğu yoktur.
Bir zincirin dizisi biliniyorsa karşı zincirin dizisi tamamlayıcılık kuralıyla bulunabilir. Ancak iki zincirin baz dizileri aynı olmak zorunda değildir; birbirini tamamlar. Toplam nükleotit sayısı iki zincirin toplamıdır, baz çifti sayısı ise bunun yarısıdır.
B) 480 – 2880
C) 480 – 3600
D) 720 – 2880
E) 720 – 3360
Antiparalel Zincirler ve 5′–3′ Yönlülüğü
Bir DNA zincirinin iki ucu kimyasal olarak farklıdır. 5′ uç, şekerin 5′ karbonuna bağlı fosfatla; 3′ uç ise şekerin 3′ karbonundaki serbest hidroksil grubuyla tanımlanır. DNA’nın iki zinciri zıt yönlerde uzandığı için biri 5′→3′ yönündeyken tamamlayıcısı 3′→5′ yönündedir; bu düzene antiparalellik denir.
Dizi yazımında varsayılan yön 5′→3′’tür. Örneğin 5′-AGTC-3′ zincirinin karşısı 3′-TCAG-5′ olur. Karşı zinciri yine 5′→3′ yönünde yazmak gerekirse sıra ters çevrilir ve 5′-GACT-3′ biçimi elde edilir.
B) 5′-T G G A C T-3′
C) 5′-A C C T G A-3′
D) 5′-G A C T T G-3′
E) 5′-U G G A C U-3′
DNA’nın Hücrede Bulunduğu Yerler ve Gen Kavramı
Prokaryot hücrelerde DNA sitoplazmadaki nükleoit bölgede ve plazmitlerde bulunabilir. Ökaryot hücrelerin başlıca DNA’sı çekirdektedir; mitokondri ve kloroplastlar da kendi DNA’larını taşır. Bu organel DNA’ları ökaryot hücrenin bütün genetik bilgisini içermez.
Gen, işlevsel bir RNA’nın veya bir polipeptidin sentezi için bilgi taşıyan DNA bölgesidir. DNA’nın tamamı tek bir gen olmadığı gibi her üçlü baz dizisi de bağımsız bir gen değildir. Hücrenin genetik bilgisinin düzenlenmesi, yalnız bazların sayısına değil, dizilişine ve genlerin kullanımına da bağlıdır.
I. ökaryotlarda DNA’nın yalnız çekirdekte bulunmadığı,
II. mitokondrinin hücrenin bütün genlerini taşıdığı,
III. farklı DNA moleküllerinin eşlenmesinin ayrı düzenlenebildiği
yargılarından hangilerini destekler?
B) Yalnız II
C) I ve III
D) II ve III
E) I, II ve III
DNA Uzunluğu, Bağ Sayıları ve Isıl Kararlılık
Aynı sayıda baz çifti taşıyan iki doğrusal DNA molekülünün uzunlukları ve toplam zincir içi fosfodiester bağlantıları aynıdır. Buna karşılık GC oranları farklıysa hidrojen bağı sayıları ve yüksek sıcaklıkta zincirlerin ayrılmasına karşı dirençleri farklı olabilir. GC çifti üç, AT çifti iki hidrojen bağı taşıdığı için GC oranı yüksek DNA’nın ayrılması genellikle daha fazla enerji gerektirir.
Bu karşılaştırma aynı uzunluktaki DNA’lar için özellikle açıktır. Daha yüksek ısıl kararlılık, nükleotit dizilerinin aynı olduğu veya fosfodiester bağlarının daha fazla olduğu anlamına gelmez.
I. X’in toplam hidrojen bağı sayısı daha fazladır.
II. X ve Y’nin zincir içi fosfodiester bağlantılarının toplamı eşittir.
III. X’in iki zincirini ayırmak için genellikle daha fazla ısı enerjisi gerekir.
yargılarından hangileri doğrudur?
B) Yalnız II
C) I ve III
D) II ve III
E) I, II ve III
B) 300
C) 400
D) 600
E) 800
DNA’nın Eşlenmesi
Yarı Korunumlu Eşlenmenin Mantığı
Replikasyon, bir DNA molekülünün kendine eş iki DNA molekülü oluşturmasıdır. İki eski zincirin her biri tamamlayıcı yeni bir zincirin sentezinde kalıp olur. Sonuçta oluşan her DNA’da ana molekülden gelen bir eski zincir ile yeni sentezlenmiş bir zincir bulunduğu için eşlenme yarı korunumlu olarak adlandırılır.
Eşlenme tamamlandığında DNA miktarı iki katına çıkar; ancak hücrenin kromozom sayısı o anda iki katına çıkmış sayılmaz. Kromozom, sentromer bölgesinden bağlı iki kardeş kromatitli hâle gelir. Kalıtsal bilginin korunması tamamlayıcı baz eşleşmesine ve polimerazların doğru nükleotidi seçmesine bağlıdır.
B) 1
C) 2
D) 3
E) 4
Replikasyonun Başlaması ve Eşlenme Çatalı
Eşlenme, replikasyon orijini adı verilen belirli DNA bölgelerinde başlar. Zincirlerin açıldığı her bölgede bir replikasyon kabarcığı, kabarcığın uçlarında Y biçimli replikasyon çatalları oluşur. Çatallar orijinden zıt yönlere ilerlediği için eşlenme çift yönlüdür.
Zincirlerin açılması tek başına yeni DNA üretmez; kalıp zincirlerin karşısına tamamlayıcı nükleotitlerin kovalent bağlarla eklenmesi gerekir. Replikasyon kabarcığının genişlemesi, açılma ile yeni zincir sentezinin eşgüdümlü sürdüğünü gösterir.
B) 3
C) 4
D) 6
E) 8
Helikaz, DNA Polimeraz ve DNA Ligaz
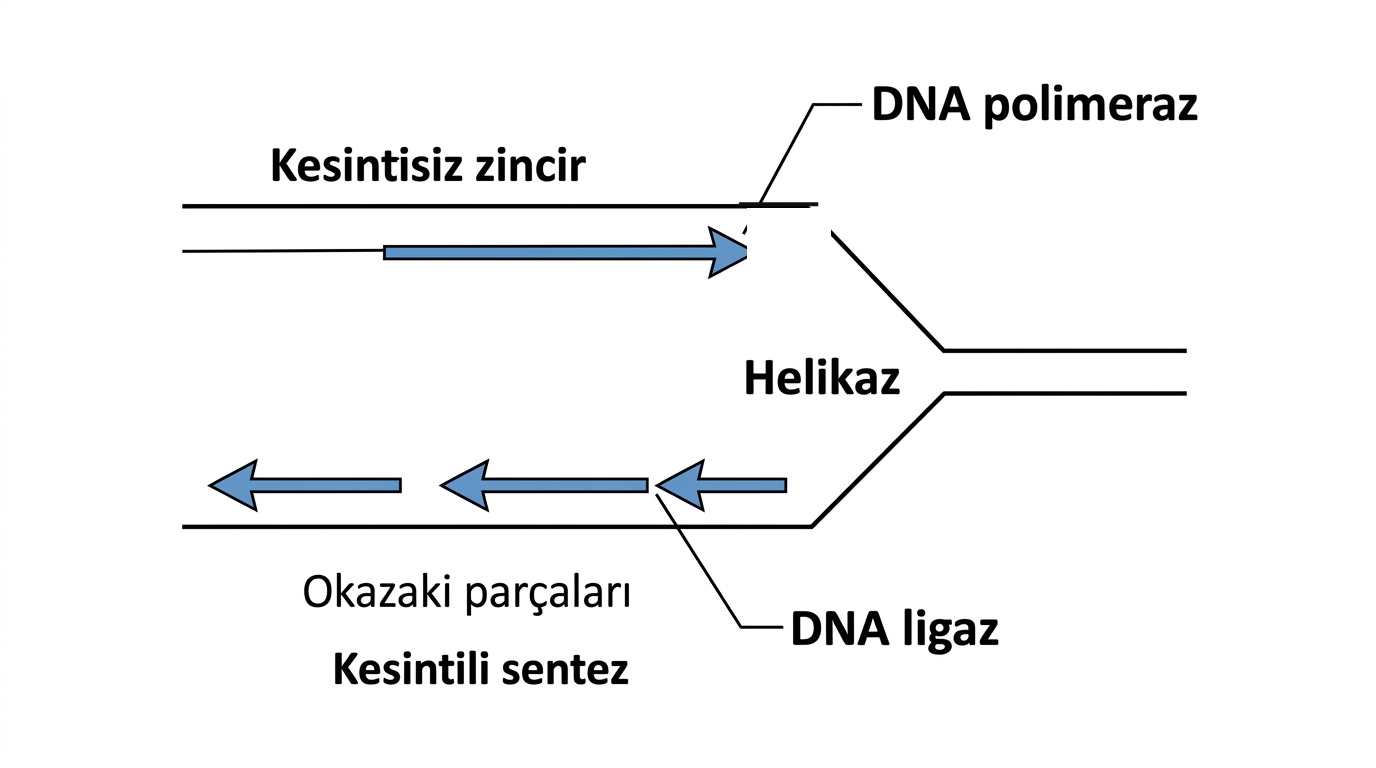
Helikaz, tamamlayıcı bazlar arasındaki hidrojen bağlarını kopararak çift sarmalı açar. DNA polimeraz, kalıp zinciri 3′→5′ yönünde okurken yeni zinciri yalnız 5′→3′ yönünde uzatır; yeni nükleotidi büyüyen zincirin serbest 3′ ucuna ekler. Lise düzeyinde bu enzim aynı zamanda doğru nükleotidin seçimiyle ilişkilendirilir.
DNA ligaz, kesintili sentezlenen zincirde oluşan DNA parçaları arasındaki boşlukları fosfodiester bağlantıları kurarak kapatır. Ligaz, bazlar arasındaki hidrojen bağlarını kuran veya sarmalı açan enzim değildir. Replikasyon için kalıp DNA, serbest deoksiribonükleotitler, enzimler ve uygun hücresel koşullar gerekir.
B) Okazaki parçalarının ligaz tarafından daha hızlı birleştirilmesi
C) DNA’nın protein kılıfla çevrilmesi
D) RNA’daki urasilin timine dönüşmesi
E) Eski zincirlerin fosfodiester bağlarının tamamen kopması
Kesintisiz ve Kesintili Sentez: Okazaki Parçaları
İki kalıp zincir antiparalel olduğu, DNA polimeraz ise yalnız 5′→3′ sentez yapabildiği için yeni zincirler aynı biçimde üretilemez. Kalıbı çatala doğru 3′→5′ uzanan zincirde yeni DNA, çatalın ilerleme yönüne doğru kesintisiz sentezlenir.
Diğer kalıp zincirde yeni DNA, çatalın ilerleyişine ters yönde kısa Okazaki parçaları hâlinde üretilir; parçalar daha sonra ligazla birleştirilir. “Kesintili zincir 3′→5′ sentezlenir” ifadesi yanlıştır: her bir Okazaki parçası da 5′→3′ yönünde sentezlenir.

B) M ve N zincirlerinin ikisi de 5′→3′ yönünde uzatılır.
C) M zincirini ligaz, N zincirini helikaz sentezler.
D) K ve L kalıp zincirleri birbirine paraleldir.
E) N zincirinde fosfodiester bağı kurulmaz.
B) Protein kılıfı ayrılmamış bakteriyofajlar
C) Karşısında baz bulunmayan bütün eski zincirler
D) Fosfatsız serbest organik bazlar
E) Yalnız kesintisiz yeni DNA zincirinde kopukluklar
Prokaryot ve Ökaryotlarda Replikasyon Orijinleri
Prokaryotların temel kromozomu çoğunlukla halkasaldır ve lise düzeyinde tek replikasyon orijininden başlayan çift yönlü eşlenmeyle açıklanır. İki çatal halka üzerinde zıt yönlerde ilerleyip karşılaştığında eşlenme tamamlanır.
Ökaryot kromozomları doğrusal ve çok uzundur; her DNA molekülünde çok sayıda orijin aynı dönemde etkinleşebilir. Komşu kabarcıklar büyüyüp birleşir. Çok sayıda orijin, ökaryot DNA polimerazlarının tek tek daha hızlı çalıştığı anlamına gelmez; uzun DNA’nın makul sürede eşlenmesini sağlar.

B) Y’de daha çok eşlenme çatalı aynı anda çalışabildiğinden eşlenme daha kısa sürebilir.
C) Y’nin baz eşleşme kuralları X’ten farklıdır.
D) X’te DNA polimeraz 3′→5′ sentez yapar.
E) Y yarı korunumlu eşlenemez.
Meselson–Stahl Deneyi
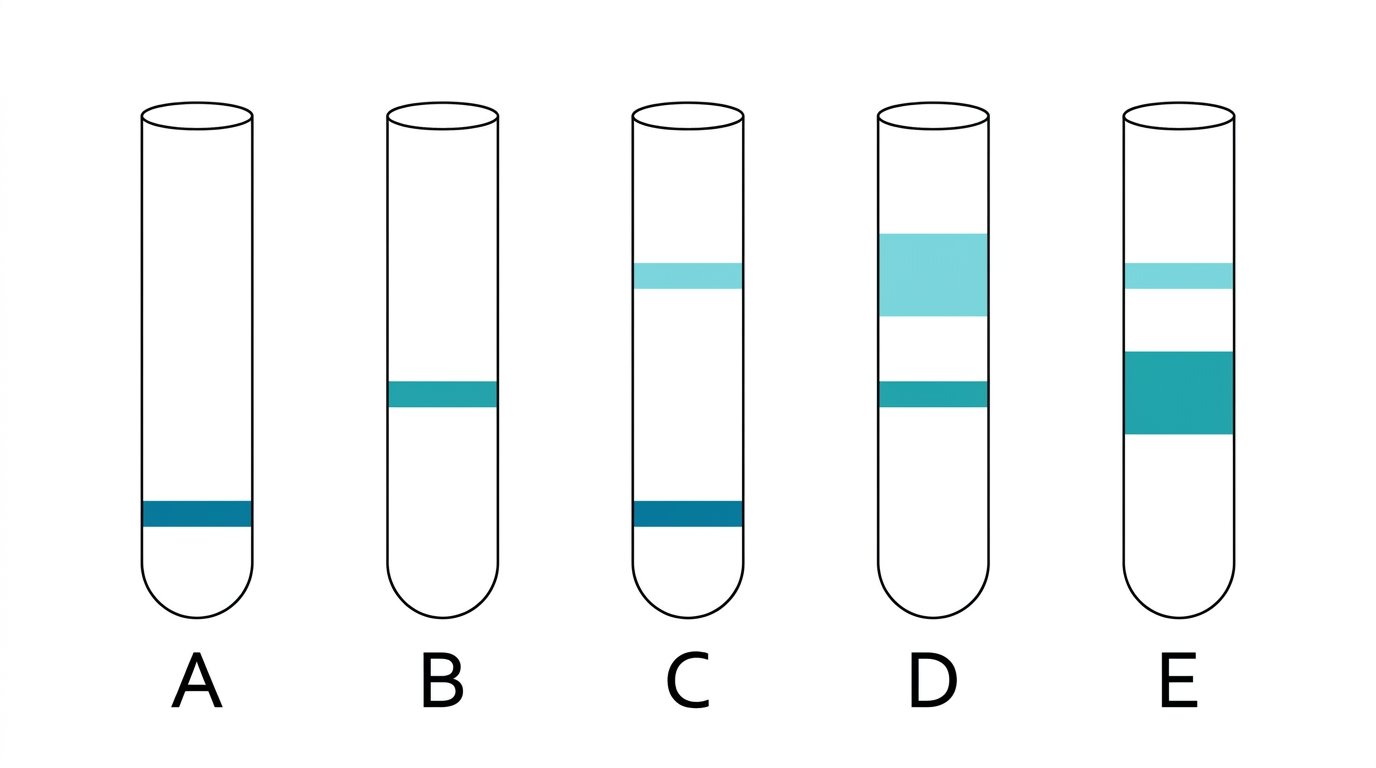
Meselson ve Stahl, bakterileri önce ağır azotlu 15N ortamında yetiştirerek DNA zincirlerini ağırlaştırdı; sonra bakterileri normal azotlu 14N ortama aktardı. DNA örneklerini yoğunluk gradyanlı santrifüjde ayırdılar. Birinci eşlenme sonunda tek ara yoğunluk bandı, ikinci eşlenme sonunda bir ara ve bir hafif bant gözlendi.
İlk nesilde tek ara bandın görülmesi korunumlu modeli dışlar; yarı korunumlu ve dağınık modeller bu sonuçla birlikte mümkün kalır. İkinci nesilde ara ve hafif bantların birlikte görülmesi, yarı korunumlu modeli dağınık modelden ayırır. Sonraki nesillerde melez DNA oranı her eşlenmede yarıya inerken hafif DNA oranı artar; ağır–ağır DNA yeniden oluşmaz.

B) Yalnız ara bant
C) Eşit kalınlıkta ağır ve hafif bant
D) %25 ara, %75 hafif DNA’yı gösteren iki bant
E) %75 ara, %25 hafif DNA’yı gösteren iki bant
DNA Yapısı ve Eşlenme Verilerinin Birlikte Yorumlanması
Baz, Nükleotit, Bağ ve Su Sayısı Problemleri
Çift zincirli DNA’da toplam nükleotit sayısı, baz çifti sayısının iki katıdır. AT ve GC çiftlerinin dağılımı belirlendiğinde toplam hidrojen bağı sayısı 2·AT + 3·GC bağıntısıyla hesaplanır.
Doğrusal bir DNA’nın iki zincirindeki fosfodiester bağlantılarının toplamı, toplam nükleotit sayısından 2 eksiktir. Polinükleotit zincirinin oluşumunda her yeni zincir içi bağlantı bir su çıkışıyla ilişkilidir. Halkasal DNA’da uçlar da birbirine bağlandığı için bu bağlantı sayısı bağıntısı kullanılmaz.
I. 900 GC baz çifti vardır.
II. Toplam 2998 zincir içi fosfodiester bağlantısı vardır.
III. 600 AT baz çifti vardır.
ifadelerinden hangileri doğrudur?
B) Yalnız II
C) I ve II
D) II ve III
E) I, II ve III
Eşlenme Turlarında Eski–Yeni Zincirlerin İzlenmesi
Tek bir çift zincirli DNA art arda n kez eşlenirse, oluşan DNA molekülü sayısı 2n olur. Başlangıçtaki iki eski zincir birbirinden ayrılır fakat parçalanmadıkları sürece sonraki kuşaklarda iki ayrı DNA molekülünün içinde korunur. Bu nedenle n eşlenme sonunda başlangıç zincirlerinden en az birini taşıyan DNA sayısı 2, oranı ise 2/2n olur.
“Eski zincir taşıyan DNA” ile “ilk eşlenmede üretilmiş zincir taşıyan DNA” aynı soru değildir. İzlenen zincir kuşağı açıkça tanımlanmalı, her zincirin sonraki eşlenmede ayrı kalıp olduğu unutulmamalıdır.
B) 1/8
C) 1/4
D) 1/2
E) Tamamı
Enzim Baskılanması ve Replikasyon Sonuçları
Helikaz baskılandığında sarmalın yeni bölgeleri açılamaz; DNA polimeraz baskılandığında yeni zincir uzatılamaz; ligaz baskılandığında özellikle kesintili zincirdeki parçalar birleşemez. Bir enzimin bozulması diğer enzimin görevini üstlenmesine yol açmaz.
Replikasyon hataları onarılamazsa baz dizisini değiştirebilir; fakat her enzim engeli kalıcı mutasyon üretmek zorunda değildir. Hücre döngüsü denetimi eşlenmesi tamamlanmamış veya hasarlı DNA taşıyan hücrenin bölünmesini durdurabilir.

B) K: sarmal açma – L: nükleotit ekleme – M: Okazaki birleştirme
C) K: nükleotit ekleme – L: Okazaki birleştirme – M: sarmal açma
D) K: protein sentezi – L: transkripsiyon – M: translasyon
E) Üç grupta da yalnız hidrojen bağı sayısı artar.