
AYT bitkilerde beslenme ve stoma fizyolojisi konu anlatımında mineral elementlerin görevleri, eksiklik belirtileri, kök ortaklıkları, stomanın açılıp kapanması ve terleme hızını belirleyen etmenler neden–sonuç ilişkisiyle işlenecektir.
AYT biyoloji konularının tamamına AYT konu anlatımı arşivinden ulaşabilirsiniz.
Bitkilerde Beslenmenin Temeli
Organik Madde Üretimi ve Mineral Beslenme
Yeşil bir bitki karbon iskeletini atmosferden aldığı CO2 ile kurar; ışık enerjisini kullanarak organik madde sentezler. Buna karşılık azot, fosfor, potasyum, magnezyum ve demir gibi mineral elementleri çoğunlukla toprak çözeltisinden iyon hâlinde alır. Bu nedenle “bitkinin besini topraktır” ifadesi yanlıştır: toprak mineral ve su kaynağıdır, organik besinin başlıca üretim yeri fotosentez yapan dokulardır.
Bir elementin bitki için zorunlu sayılması; yokluğunda yaşam döngüsünün tamamlanamaması, görevinin başka bir elementle bütünüyle karşılanamaması ve doğrudan metabolik/yapısal bir işleve katılmasıyla ilişkilidir. Elementin dokuda çok bulunması zorunluluğun ölçütü değildir.
B) Azot, ışık enerjisinin doğrudan kaynağıdır.
C) Karbonhidrat üretilebilse de protein ve nükleik asit sentezi azot yetersizliğiyle sınırlanır.
D) CO2, kökler tarafından alınamadığı için kullanılamaz.
E) Mineral iyonları yalnız solunumda görev yapar.
Makro ve Mikro Element Ayrımı
Makro elementler bitki dokusunda görece fazla, mikro elementler çok daha az miktarda gereklidir. Ayrım biyolojik önem değil, gereksinim miktarıdır. Bir mikro elementin eksikliği de yaşam döngüsünü kesintiye uğratabilir; az gerekmesi önemsiz olduğu anlamına gelmez.
AYT düzeyinde N, P, K, Ca, Mg ve S makro; Fe, Zn, Cu, Mn, B, Mo, Cl ve Ni mikro element örnekleri olarak düşünülür. C, H ve O da çok miktarda kullanılır; ancak büyük ölçüde CO2 ve sudan sağlandıkları için “topraktan alınan mineral tuzlar” listesiyle karıştırılmamalıdır.
B) Eksikliği metabolizmayı ciddi biçimde bozabilir.
C) Başka bir element tarafından tam olarak ikame edilemeyebilir.
D) Az kullanıldığı için bitkinin yaşam döngüsünü etkilemez.
E) Enzim ya da elektron taşıyıcı yapısına katılabilir.
Mineral Elementler ve Eksiklik Belirtileri
Temel Elementlerin Görevleri
Azot amino asit, protein, nükleik asit ve klorofil yapısında; fosfor ATP, nükleotit, nükleik asit ve fosfolipitlerde; potasyum enzim aktivasyonu, ozmotik düzenleme ve stoma hareketlerinde rol oynar. Magnezyum klorofilin merkez atomudur ve birçok enzimi etkinleştirir. Kalsiyum hücre duvarı/orta lamel, zar kararlılığı ve hücresel sinyallemede; demir klorofilin parçası olmamasına karşın klorofil sentezi ve elektron taşıma proteinlerinde önemlidir.
Bu ilişkiler tek yönlü ezberlenmemelidir. Örneğin Mg eksikliği klorofil miktarını; Fe eksikliği klorofil sentezini azaltabilir. İki durumda da kloroz görülebilir, fakat belirtinin önce hangi yapraklarda ortaya çıktığı element hareketliliğiyle ayrım sağlar.
B) Fosfor
C) Demir
D) Potasyum
E) Magnezyum
Hareketli ve Hareketsiz Elementler
Floemde kolayca yeniden taşınabilen N, P, K ve Mg gibi hareketli elementler yetersiz olduğunda bitki bunları yaşlı yapraklardan genç dokulara aktarabilir; belirti önce yaşlı yapraklarda belirginleşir. Ca ve Fe gibi floemde hareketliliği düşük elementlerin eksikliği ise büyüyen genç yaprak ve meristemlerde önce görülür.
Belirtinin yeri tek başına kesin tanı koydurmaz; ışık, hastalık, pH ve kök hasarı da kloroza yol açabilir. Ancak eş koşullarda yaşlı–genç yaprak dağılımı güçlü bir fizyolojik kanıttır.
B) Fe ve Mg
C) Ca ve K
D) Fe ve N
E) B ve P
B) Kontrol ile bütün eksiklikler, çünkü her eksiklik aynı rengi oluşturur.
C) N ile Mg, çünkü elementlerin ikisi de hareketsizdir.
D) Fe ile kontrol, çünkü Fe eksikliği yalnız kökte görülür.
E) Fe eksikliği; genç yaprak klorozu, hareketli N ve Mg eksikliğinin yaşlı yaprak başlangıcından ayrılır.
B) Mg yalnız genç yaprakta birikir; kök organik madde üretir.
C) Mg eksikliği atmosferik azotu doğrudan artırır.
D) Kloroz stomaları ksileme dönüştürür.
E) Kök büyümesi fotosentezden bağımsızdır.
Toprak pH’sı ve Mineral Yarayışlılığı
Toprakta bir elementin bulunması, kökün onu mutlaka alacağı anlamına gelmez. pH; iyonun çözünürlüğünü, toprağa bağlanmasını ve mikroorganizma etkinliğini değiştirir. Aşırı asidik ya da bazik koşullar bazı elementleri toksik düzeye çıkarırken bazılarını bitki için erişilemez hâle getirebilir.
Kök hücrelerinin aktif taşıması da solunumla ATP üretimine bağlıdır. Suya doygun ve oksijensiz toprakta mineral bol olsa bile kök solunumu yavaşladığından iyon alımı azalabilir.
B) Kök çevresi pH’sını uygun aralığa yaklaştırmak; toplam Fe değişmese de yarayışlılık artabilir.
C) Toprağı sürekli su altında bırakmak; oksijensizlik aktif alımı artırır.
D) Yaprakları karanlıkta tutmak; Fe klorofilin merkez atomudur.
E) Potasyumu tümüyle kaldırmak; Fe doğrudan K’ye dönüşür.
Kök Ortaklıkları ve Sınırlayıcı Etmen
Rhizobium ve Kök Nodülü
Baklagillerin kök nodüllerindeki Rhizobium bakterileri atmosferik N2‘yi bitkinin kullanabileceği azotlu bileşiklere dönüştürür. Bitki bakteriye fotosentez ürünleri ve korunmuş bir yaşam alanı sağlar. İki tarafın yarar gördüğü bu ilişki mutualizmdir.
Azot bağlama yüksek enerji ister ve nitrogenaz enzimi oksijene duyarlıdır. Nodül içindeki düzenlenmiş düşük serbest oksijen ortamı, bakterinin solunumu ile enzimin korunması arasında denge kurar. Baklagilin hasadından sonra kök/nodül artıklarının toprakta kalması, ekim nöbetinde sonraki ürünün azot koşullarını iyileştirebilir.
B) Tahıl köklerinin nodül oluşturarak CO2 bağlaması
C) Rhizobium’un bitkiden mineral azot alıp atmosfere vermesi
D) Mantarların yalnız organik karbon üretmesi
E) Nodül bakterilerinin N2‘yi bağlaması ve azotlu artıkların toprağa katılması
B) L’nin tek azot kaynağı atmosferik N2‘dir.
C) M, dış nitrat olmadan simbiyotik azot bağlama sayesinde K’den daha iyi gelişebilir.
D) N’de bakteri bitkiden karbon alamaz.
E) Bütün saksılarda aynı sayıda nodül zorunludur.
Mikoriza ve Böcekçil Bitkiler
Mikoriza, mantar hifleri ile bitki kökü arasındaki ortaklıktır. Hifler kökün erişemediği küçük gözeneklere uzanarak özellikle fosfat ile su alım yüzeyini büyütür; bitki mantara organik karbon verir. Mikoriza azot bağlayan bakteri nodülü değildir.
Böcekçil bitkiler fotosentez yapar; karbon ve enerjilerinin başlıca kaynağı yakaladıkları hayvanlar değildir. Azotça fakir habitatlarda avlarını sindirerek özellikle azot ve bazı mineralleri tamamlarlar. Bu özellik onları heterotrof yapmaz.
B) Ortaklık düşük fosfat koşulunda bitkiye yarar sağlayabilir.
C) Bitki mantara fotosentez ürünü aktarabilir.
D) Mantar atmosferik N2‘yi zorunlu olarak bağlamıştır.
E) Kök çevresi ortaklıkları mineral beslenmeyi etkileyebilir.
B) Fotosentez yapamadığı için bütün ATP’sini avdan almak zorundadır.
C) Av olmadan CO2 alamaz.
D) Klorofilini hayvan proteininden hazır alır.
E) Mineral eksikliği yalnız kök rengini etkiler.
Minimum Yasası
Liebig’in minimum yasasına göre büyüme, gereksinime göre en az bulunan kaynak tarafından sınırlandırılır. Diğer elementleri artırmak, sınırlayıcı element düzeltilmedikçe verimi belirgin yükseltmez. Eksik element tamamlandığında başka bir etmen yeni sınırlayıcı olabilir.
B) Fosfor azota dönüşür.
C) Bütün minerallerin alımı durur.
D) Azot açığı sürdüğü için büyümede belirgin artış olmayabilir.
E) Stomalar kalıcı olarak kapanır.

Grafikte kontrol bitkisine önce P, sonra aynı P düzeyinde N, son olarak N ve P sabitken K eklenmiştir. P tek başına etkisiz, N eklenince büyük artış, K eklenince ikinci artış görülüyor. En uygun yorum hangisidir?
B) P her aşamada tek sınırlayıcıdır.
C) K başlangıçta fazlalığı nedeniyle büyümeyi durdurmuştur.
D) Her element büyümeyi eşit miktarda artırır.
E) Minimum yasası yalnız hayvanlarda geçerlidir.
Stomanın Yapısı ve Bitkideki Dağılımı
Bekçi Hücreleri ve Stoma Açıklığı
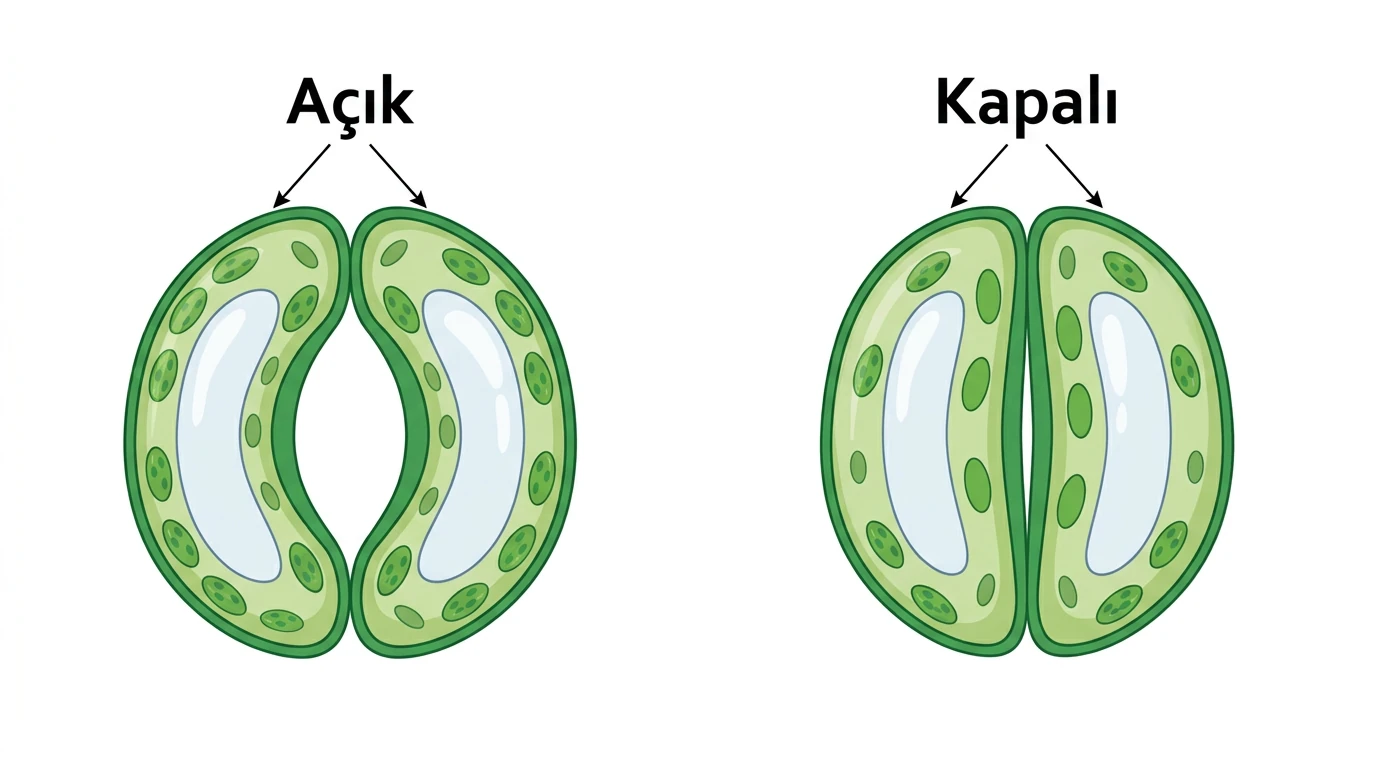
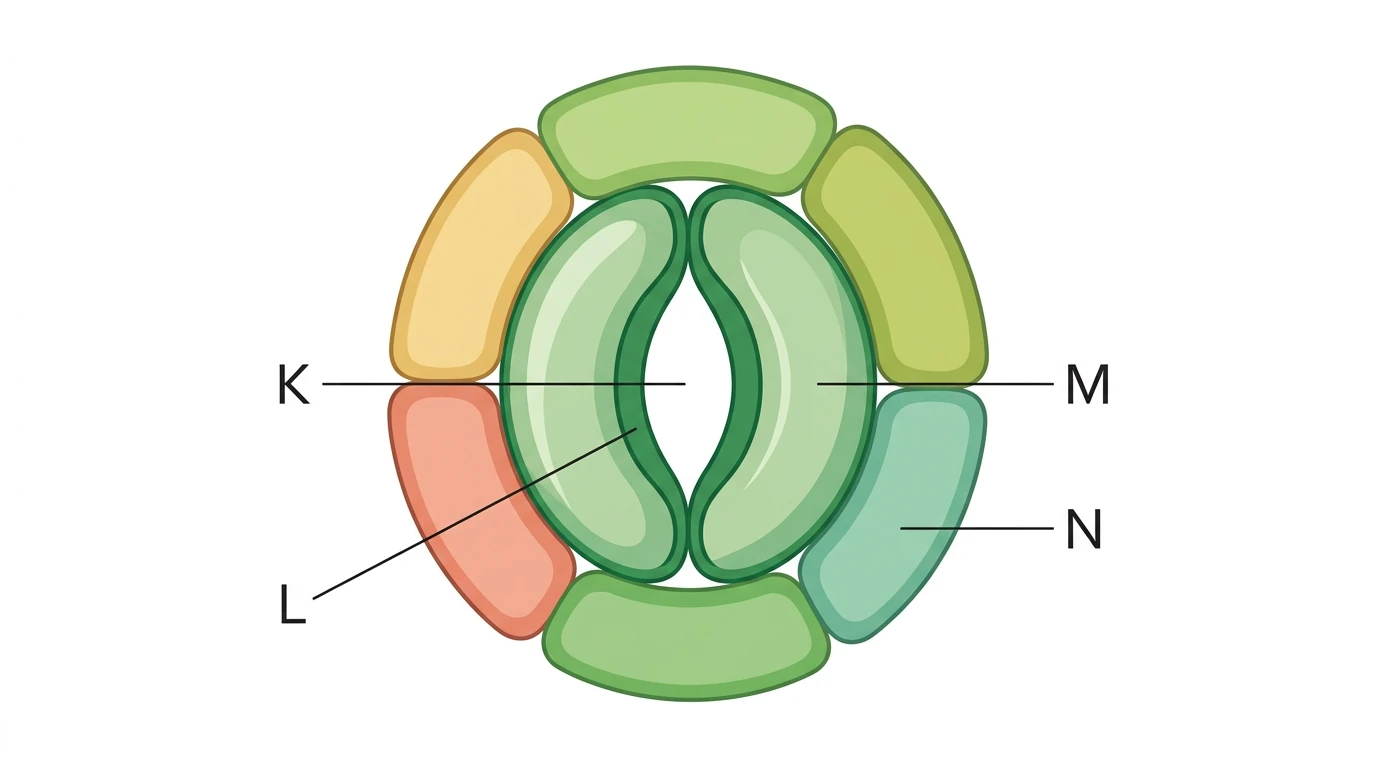
Stoma, iki bekçi hücresinin çevrelediği gözenek ile ilişkili epidermis yapısıdır. Bekçi hücreleri, sıradan epidermis hücrelerinden farklı olarak kloroplast taşır. Gözenek tarafındaki iç çeper daha kalın ve az esnek, dış çeper daha ince ve esnektir. Turgor arttığında dış çeper daha çok genişler, hücreler bükülür ve por açılır; turgor azalınca por kapanır.
B) Kloroplastlar çekirdeğe dönüşür.
C) Por yalnız geceleri açılır.
D) Epidermis ksilemleşir.
E) Turgor artsa da farklı genişleme ve bükülme zayıfladığı için açıklık normal düzeyde oluşmayabilir.
B) N hücrelerinin kloroplast taşıması stomaların açılması için zorunludur.
C) M’nin turgoru değişebilir.
D) L’nin dış çeperden daha az esnek olması bükülmeye katkı sağlar.
E) K’den su buharı çıkışı gerçekleşebilir.
Yaşam Ortamına Göre Stoma Konumu
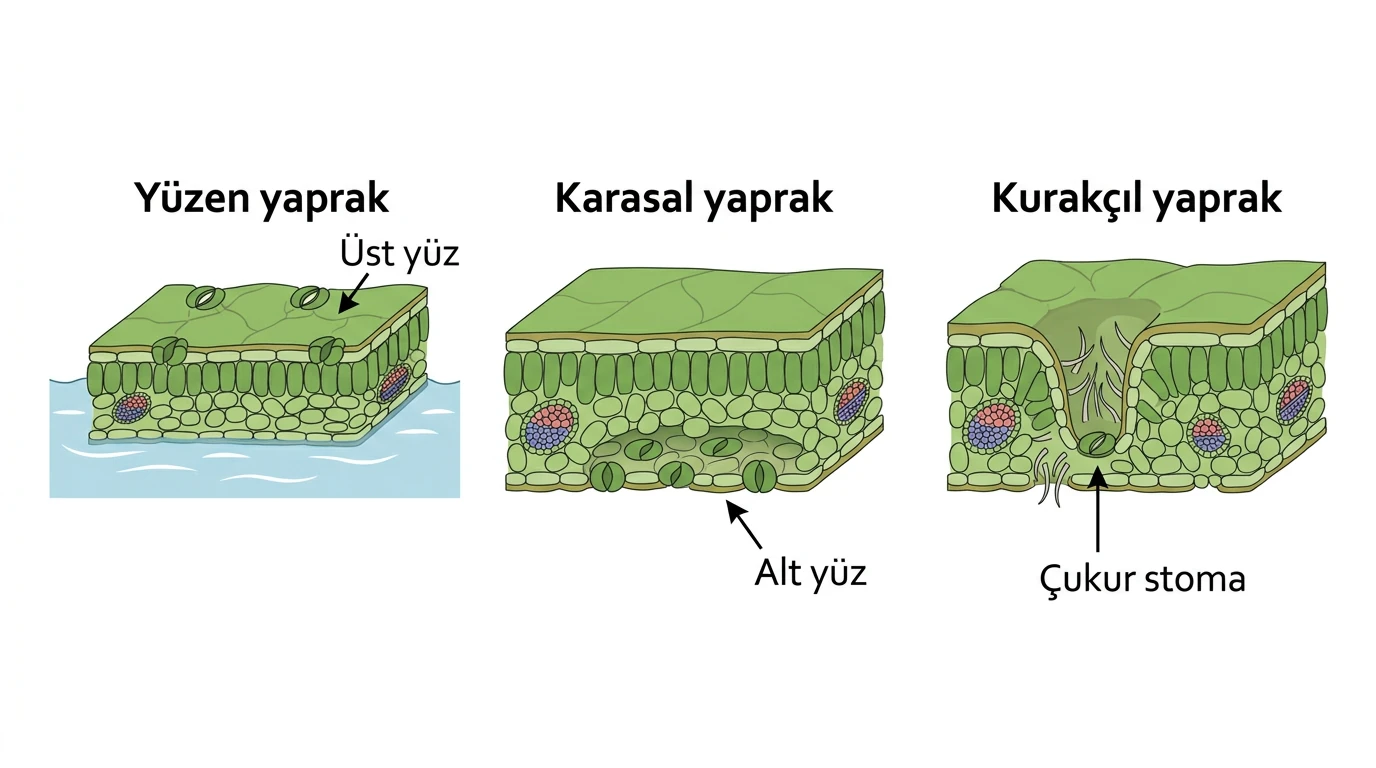
Yüzen yapraklı su bitkilerinde alt yüzey suyla temas ettiğinden stomalar çoğunlukla üst epidermistedir. Su altında kalan yapraklarda işlevsel stoma bulunmayabilir. Karasal mezofit yapraklarda stomaların alt yüzde daha yoğun olması doğrudan güneş ve hava akımına maruz kalmayı azaltır.
Kurakçıl bitkilerde stomalar çukurda bulunabilir; kalın kütikula, tüyler, küçük/yuvarlanmış yaprak ve düşük yüzey/hacim oranı su kaybını azaltabilir. Bu özelliklerin çoğu stoma sayısını sıfırlamaz, gözenek çevresindeki nemli sınır tabakasını korur.
B) K her iki yüz; L yalnız üst; M su altında
C) K çoğunlukla üst yüz; L çoğunlukla alt yüz; M çukurda ve korunaklı
D) K çukurda; L su altında; M yalnız alt yüzeyde açık
E) Üçünde de stoma konumu çevreden bağımsızdır.
Stomanın Açılıp Kapanma Mekanizması
İyon Hareketi, Su Potansiyeli ve Turgor
Işıkta birçok türün bekçi hücresinde proton pompaları etkinleşir; K+ ve dengeleyici anyonların birikmesi hücrenin çözünen madde potansiyelini düşürür. Su potansiyeli çevre hücrelere göre azalınca su osmozla bekçi hücrelerine girer, turgor yükselir ve stoma açılır. Kapanmada iyonlar dışarı çıkar, su potansiyeli yükselir, su çıkar ve turgor düşer.
Bazı lise kaynaklarında ışıkta nişastanın şekere dönüşmesiyle ozmotik yoğunluğun arttığı açıklaması da kullanılır. Güncel fizyolojik modelde iyon taşınması ve organik anyonlar merkezîdir; AYT yorumunda ortak sonuç çözünen madde artışı → su potansiyeli düşüşü → su girişi → turgor artışıdır.
B) K+ çıkışı → su potansiyelinin düşmesi → su girişi → açılma
C) Su çıkışı → K+ sentezi → kloroplast kaybı
D) ATP artışı → çeperin tamamen çözünmesi
E) K+ çıkışı → nişastanın DNA’ya dönüşmesi
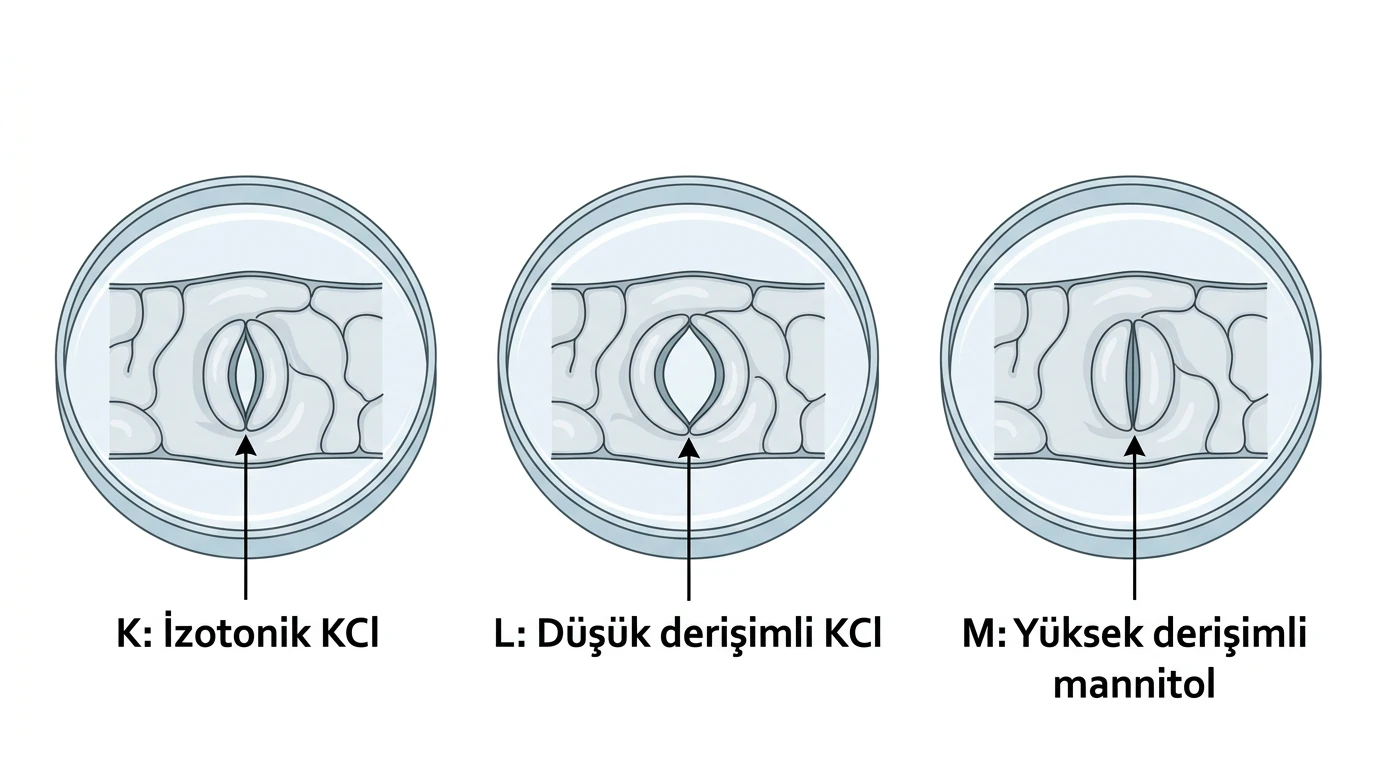
B) Mannitol bekçi hücresinde klorofil sentezini artırır.
C) İyon dengesi ve dış ortamın su potansiyeli bekçi hücresi turgorunu birlikte belirler.
D) Por açıklığı epidermisten bağımsızdır.
E) Su hareketi daima düşük çözünen derişimine doğrudur.
Işık, Karbondioksit ve ABA
Işık, özellikle mavi ışık sinyali, birçok bitkide stomaların açılmasını destekler. Yaprak içi CO2 düzeyinin azalması açılmayı, yükselmesi kapanmayı teşvik edebilir. Ancak su kıtlığında yapraklardan ve köklerden gelen sinyaller baskınlaşır.
Kuraklıkta absisik asit (ABA) bekçi hücrelerinde iyon çıkışını tetikler; su hücreyi terk eder ve stoma kapanır. Böylece su kaybı azalır, fakat CO2 girişi de sınırlanır. Bu, bitkinin “büyümeyi en üst düzeye çıkarma” yerine kısa vadede su dengesini koruma tercihidir.
B) Normal bitki CO2‘yi kökten alır.
C) Mutantta terleme sıfırlanır.
D) Mutant kısa süre CO2 alımını sürdürebilir; fakat su potansiyeli daha hızlı düşebilir.
E) ABA yalnız hücre bölünmesini artırır.
B) Fotosentez CO2 üretimini zorunlu olarak artırır.
C) K+ artışı su potansiyelini yükseltir.
D) Bekçi hücresi turgoru değişemez.
E) Işık ve düşük iç CO2 açılmayı destekler; K+ birikimiyle su girişi olur.
Terleme ve Gaz Alışverişi
Terlemenin Yolu ve İşlevleri
Terleme, suyun bitkinin toprak üstü kısımlarından çoğunlukla su buharı olarak kaybıdır. Mezofil hücrelerinin nemli çeperlerinden yaprak içi boşluklara buharlaşan su, büyük ölçüde stomalardan atmosfere difüze olur; daha azı kütikula ve lentisellerden kaybedilir.
Terleme ksilemde çekim gerilimi oluşturarak su ve mineral taşınmasına katkı sağlar, yaprağı serinletebilir ve su akışını sürdürür. Fakat aşırı terleme turgor kaybı ve solmaya yol açar. Terleme “fotosentezin ürünü” değildir; gaz alışverişine açık yüzeyin fiziksel maliyetidir.
B) I, II ve III genel olarak azalır.
C) Yalnız II artar.
D) I artar, II ve III değişmez.
E) III artar, I azalır.
Terleme ve Gutasyon Ayrımı
Gutasyon, kök basıncının etkisiyle yaprak kenarındaki hidatotlardan sıvı su damlalarının çıkmasıdır; nemli gecelerde, terlemenin düşük ve toprağın suca zengin olduğu koşullarda belirginleşebilir. Terleme ise çoğunlukla stomalardan su buharı kaybıdır ve gündüz artma eğilimindedir.
Gutasyon damlasında çözünmüş mineraller bulunabilir; çiy ise atmosferdeki su buharının yaprak üzerinde yoğuşmasıdır. Bu üç olayın kaynağı ve çıkış yolu farklıdır.
B) Atmosferik suyun yalnız kütikulada yoğuşması
C) Floem öz suyunun lentiselden akması
D) Fotosentez suyunun porlarda birikmesi
E) Kök basıncıyla ksilem öz suyunun hidatotlardan sıvı hâlde çıkması
Terleme Hızını Etkileyen Faktörler
Çevresel Faktörler
Işık stomaları açabildiği için terlemeyi genellikle artırır. Sıcaklık suyun buharlaşmasını ve havanın taşıma kapasitesini yükseltebilir; fakat aşırı sıcaklık su stresine bağlı stoma kapanması oluşturursa ilişki doğrusal kalmaz. Hava nemi arttıkça yaprak–atmosfer su buharı gradyanı küçülür ve terleme azalır.
Orta şiddette rüzgâr yaprak çevresindeki nemli sınır tabakasını uzaklaştırarak terlemeyi artırır. Çok şiddetli/uzun rüzgâr su stresini artırıp stomaları kapattırabilir. Toprak suyu azaldığında ABA aracılığıyla stoma kapanması terlemeyi düşürür. Yüksek dış CO2 bazı koşullarda stomaların daha az açılmasına yol açabilir.
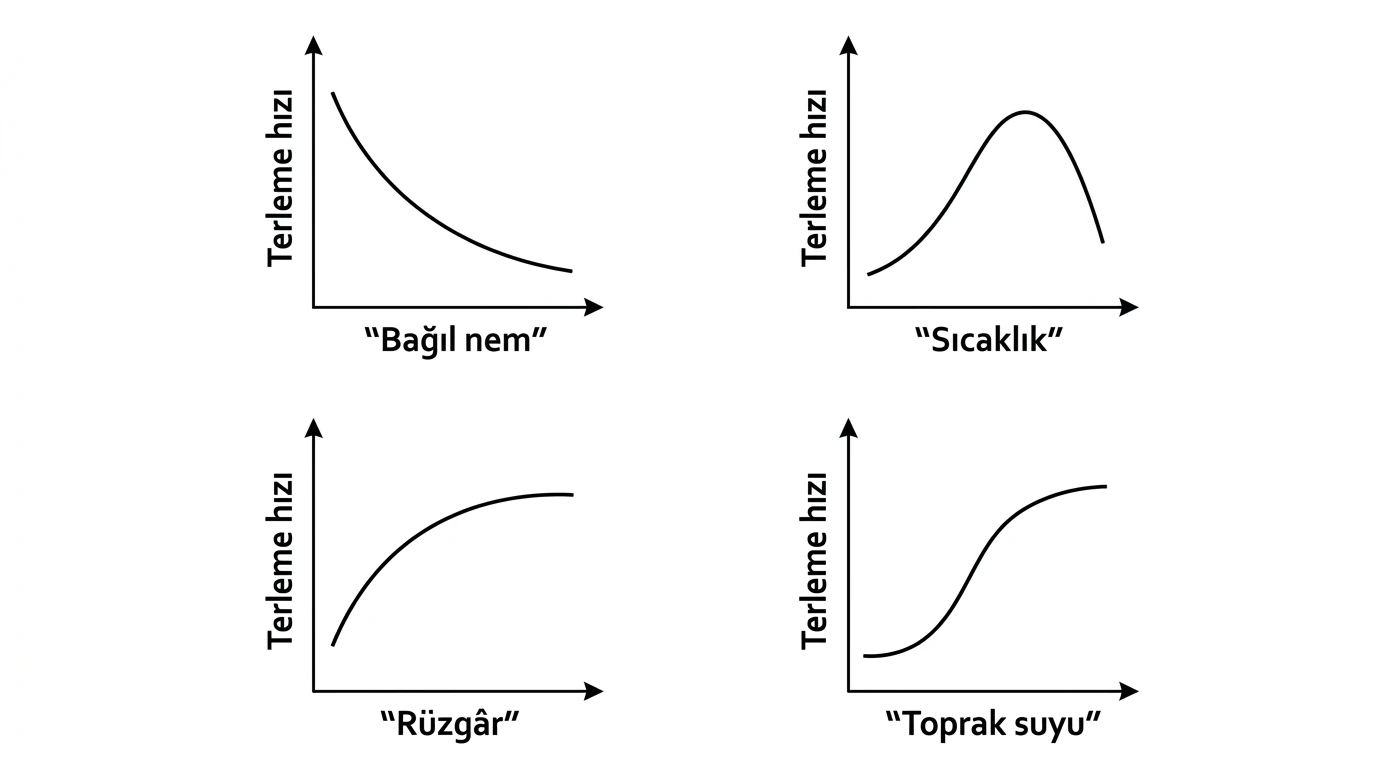
B) Yaprak–hava su buharı farkı azalır, terleme azalır.
C) Kök basıncı zorunlu olarak sıfırlanır.
D) CO2 organik azota dönüşür.
E) Kütikula tamamen çözünür.
B) Rüzgâr yalnız fotosentez pigmentlerini çoğaltır.
C) Çok yüksek rüzgâr havanın nemini daima yüzde yüze çıkarır.
D) Stomalar mekanik olarak ksileme dönüşür.
E) Terleme rüzgârdan bağımsızdır.
Bitkiye Ait Faktörler
Yaprak alanı ve stoma sayısı arttıkça potansiyel terleme yüzeyi artar. Kalın kütikula, çok katlı epidermis, çukur stoma ve yoğun tüyler su kaybını azaltabilir. Tüyler ve çukur stomalar gözenek çevresinde hareketsiz, nemli bir hava tabakası tutar.
Geniş ve derin kök sistemi toprağın daha büyük hacminden su sağlayarak stomaların daha uzun süre açık kalmasına yardımcı olabilir. Dolayısıyla bir özellik suyu doğrudan “engellemek” yerine bitkinin su kazanım–kayıp dengesini değiştirebilir.
B) Yalnız II
C) I, II ve III
D) I ve III
E) II ve III
B) M > K > N > L
C) K > L > M > N
D) L = M = N > K
E) K = N > L = M
Deneysel ve Bütünleşik AYT Yorumu
Potometre ile Su Alımının İzlenmesi
Potometre, kesilmiş bir sürgünün belirli sürede aldığı suyu hava kabarcığının kılcal borudaki hareketinden tahmin eder. Bu değer terlemeye yakın bir göstergedir, fakat suyun bir kısmı büyüme, turgor ve fotosentez gibi süreçlerde tutulduğundan terlemeyi doğrudan ve kusursuz ölçmez.
Düzeneğin hava sızdırmaması, dalın su altında kesilmesi, yaprak alanının kaydedilmesi ve tek bağımsız değişken dışında koşulların sabit tutulması gerekir. Hava kabarcığı ksileme girerse su sütununun sürekliliği bozulabilir.
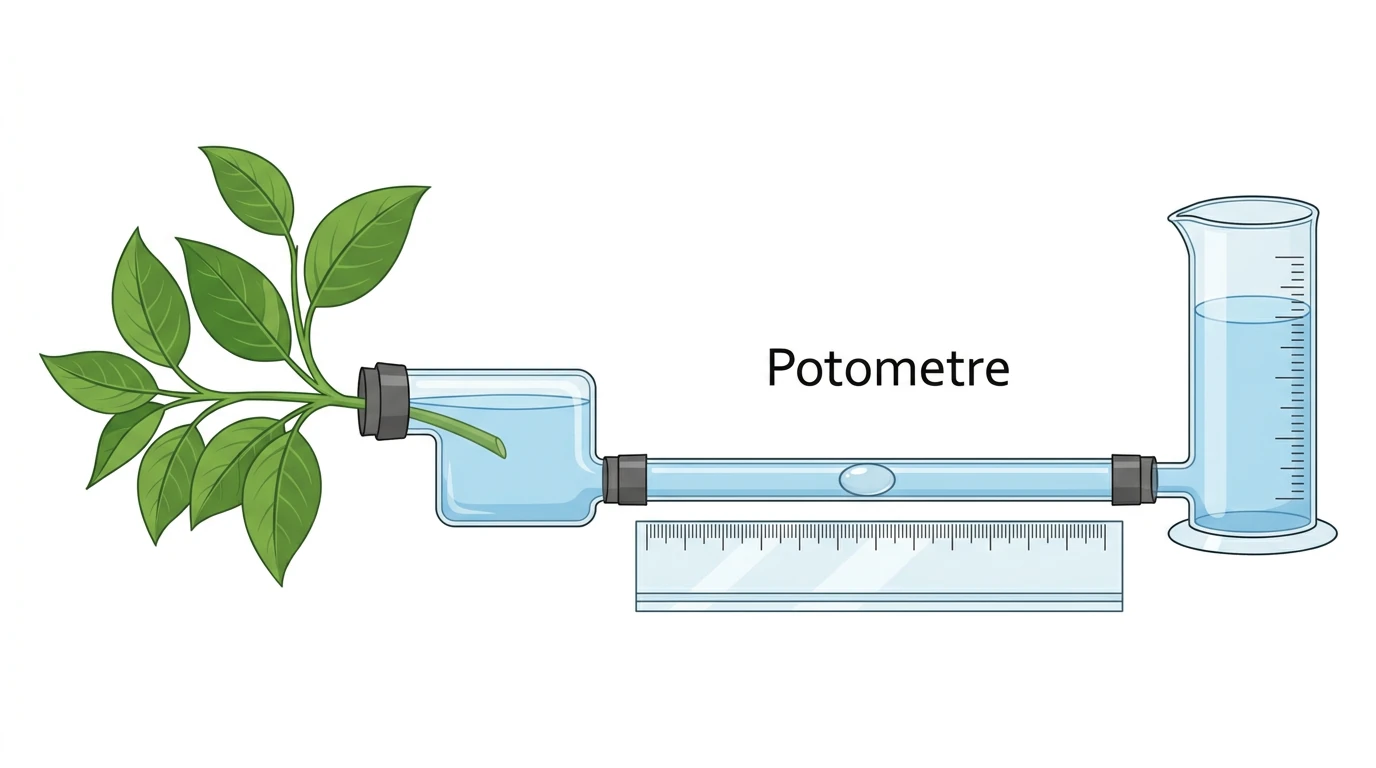
B) Karanlıkta bütün stomalar zorunlu olarak sıfır açıklıktadır.
C) Kabarcık yalnız floemde şeker taşınmasını ölçer.
D) Aydınlıkta su alım hızı daha yüksektir; bu terlemenin arttığını destekler fakat kaybedilen suyu doğrudan ölçmez.
E) Düzeneğin sızdırması sonucu etkilemez.
Grafik ve Çok Değişkenli Yorum
B) Öğle saatinde fotosentez zorunlu olarak maksimumdur.
C) Yaprak içi CO2 tek belirleyicidir.
D) Öğle sıcaklığı ve su açığı ABA/stoma kapanmasını tetikleyerek ışığın açıcı etkisini bastırmıştır.
E) Terleme yalnız kök basıncıyla oluşur.
B) L’de ilk hız yüksek olabilir; M’de başlangıç artışını su stresine bağlı kapanma izleyebilir.
C) M’de stomalar daima tam açık kalır.
D) Nem ve rüzgâr difüzyonu etkilemez.
E) Toprak suyu yalnız fotosentez pigmentini etkiler.
B) Rhizobium fosfat, mikoriza atmosferik N2 üretir.
C) Stomaların kapanması su kaybını ve CO2 girişini birlikte artırır.
D) Bir element yeterliyse hiçbir çevresel etmen sınırlayıcı olamaz.
E) Ortaklıklar N ve P koşullarını iyileştirse de su yeni minimum etmen olabilir; stoma kapanması karbon kazanımını sınırlar.