
AYT hücresel solunum konu anlatımı kapsamında glikoliz, pirüvat oksidasyonu, Krebs döngüsü, elektron taşıma sistemi, kemiozmoz, besinlerin solunuma katılması ve oksijensiz solunum ayrıntılı biçimde işlenecektir.
AYT biyoloji konularının tamamına AYT konu anlatımı arşivinden ulaşabilirsiniz.
Hücresel Solunumun Temeli
Enerjinin Basamaklı Açığa Çıkarılması
Hücresel solunum, organik moleküllerdeki kimyasal enerjinin bir dizi kontrollü yükseltgenme–indirgenme tepkimesiyle ATP üretiminde kullanılabilir hâle getirilmesidir. Glikozun bir anda yakılması yerine küçük basamaklarla oksitlenmesi, enerjinin büyük bölümünün ısı olarak dağılmasını önler. Açığa çıkan enerjinin bir kısmı ATP bağlarında, önemli bir kısmı da NADH ve FADH₂ gibi indirgenmiş koenzimlerde geçici olarak tutulur.
Solunum yalnız “oksijen almak” değildir. Oksijenli solunumda oksijen son elektron alıcısıdır; fakat glikolizde doğrudan kullanılmaz. Hücrenin ATP gereksiniminin tümü tek bir evreden sağlanmaz: glikoliz ve Krebs döngüsünde substrat düzeyinde fosforilasyon, elektron taşıma sisteminde oksidatif fosforilasyon gerçekleşir.
B) Organik molekül indirgenirken NAD⁺ yükseltgenmiştir.
C) Elektron ve hidrojenler önce NADH üzerinde taşınmış, sonra ATP üretimine katkı sağlayabilecek bir indirgeme gücü oluşturmuştur.
D) Oksijen glikolizin bütün basamaklarında substrat olarak kullanılmıştır.
E) NADH yalnız karbon iskeleti üretir.
Yükseltgenme, İndirgenme ve Koenzimler
Elektron ya da hidrojen kaybeden molekül yükseltgenir, elektron ya da hidrojen kazanan molekül indirgenir. Glikoz ve türevleri solunum boyunca yükseltgenirken NAD⁺ ve FAD elektron alarak sırasıyla NADH ve FADH₂’ye indirgenir. Koenzimler enerji üretmez; yüksek enerjili elektronları bir basamaktan diğerine taşır.
NADH elektronlarını ETS’nin daha yüksek enerjili bir giriş noktasına, FADH₂ ise daha aşağı bir noktaya verir. Bu nedenle aynı sayıda NADH ve FADH₂ eşit ATP katkısı sağlamaz. Elektron alıcısı bulunmazsa NADH’nin NAD⁺’ye geri yükseltgenmesi aksar; NAD⁺ havuzu tükendiğinde glikoliz de devam edemez.
B) FADH₂’nin hiç elektron taşımaması
C) NADH’nin Krebs döngüsünde doğrudan ATP’ye çevrilmesi
D) FADH₂’nin yalnız sitoplazmada bulunması
E) NADH’nin son elektron alıcısı olması
Oksijenli Solunum, Anaerobik Solunum ve Fermantasyon
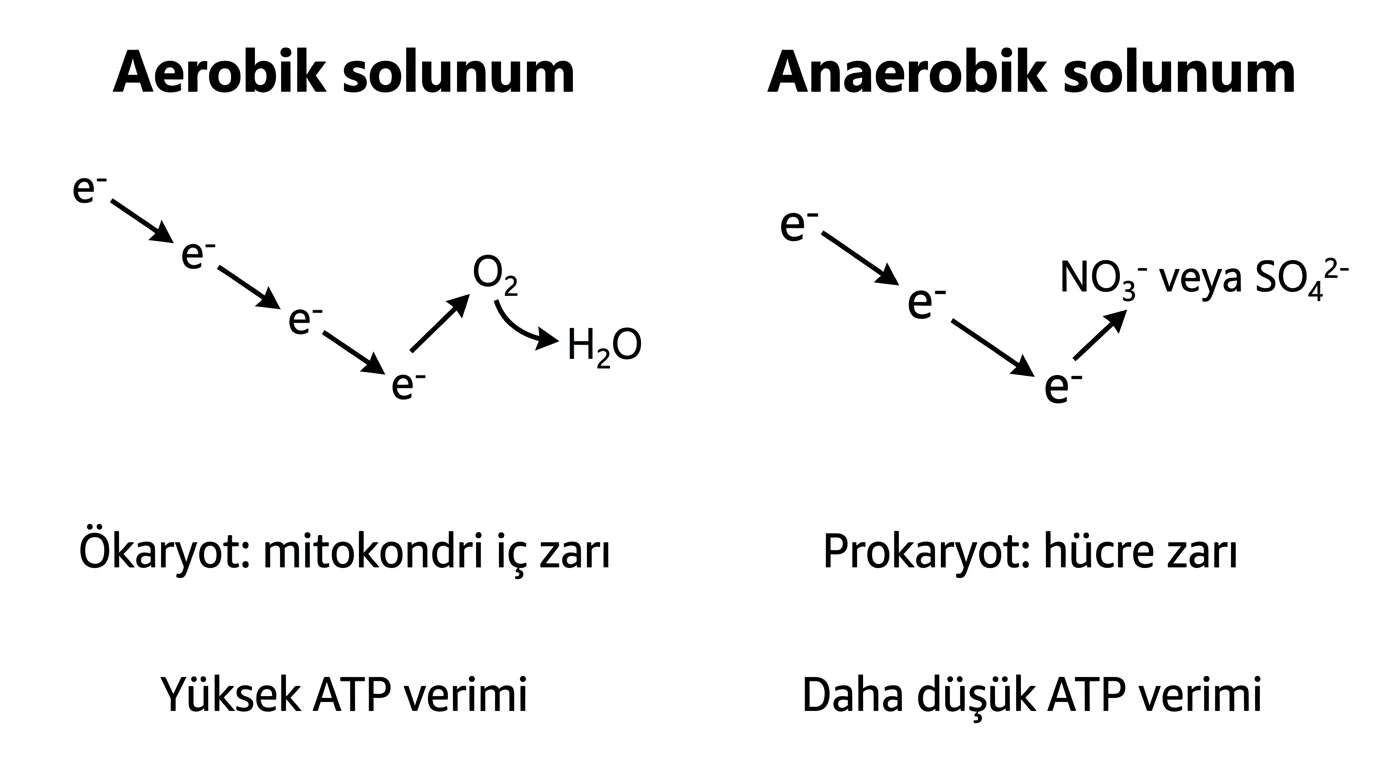
Oksijenli solunumda ETS vardır ve son elektron alıcısı O₂’dir. Anaerobik solunumda yine ETS kullanılır; fakat son alıcı nitrat, sülfat ya da başka bir inorganik molekül olabilir. Fermantasyonda ise ETS yoktur; NADH’nin elektronları organik bir moleküle aktarılır ve ATP yalnız glikolizin substrat düzeyinde fosforilasyon basamaklarından sağlanır.
Bu ayrım AYT’de kritik bir sınıflandırma ölçütüdür. “Oksijensiz ortamda ATP üretimi” ifadesi tek başına fermantasyonu kanıtlamaz. ETS ve dışsal son elektron alıcısı varsa anaerobik solunum; organik son alıcıyla NAD⁺ yenileniyor ve ETS yoksa fermantasyon söz konusudur. Fermantasyon çeşitleri bir sonraki yazının ayrıntılı konusudur.
Solunumun Hücresel Konumları
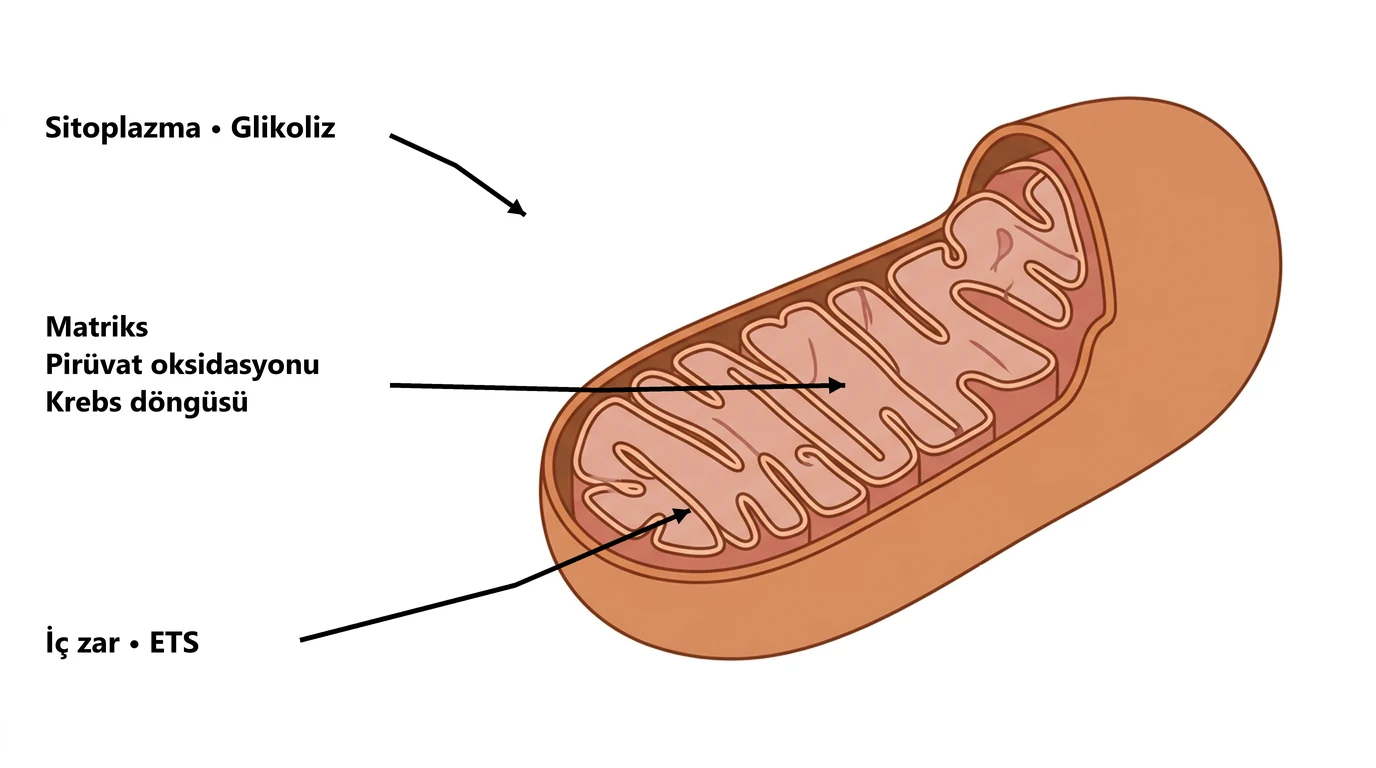
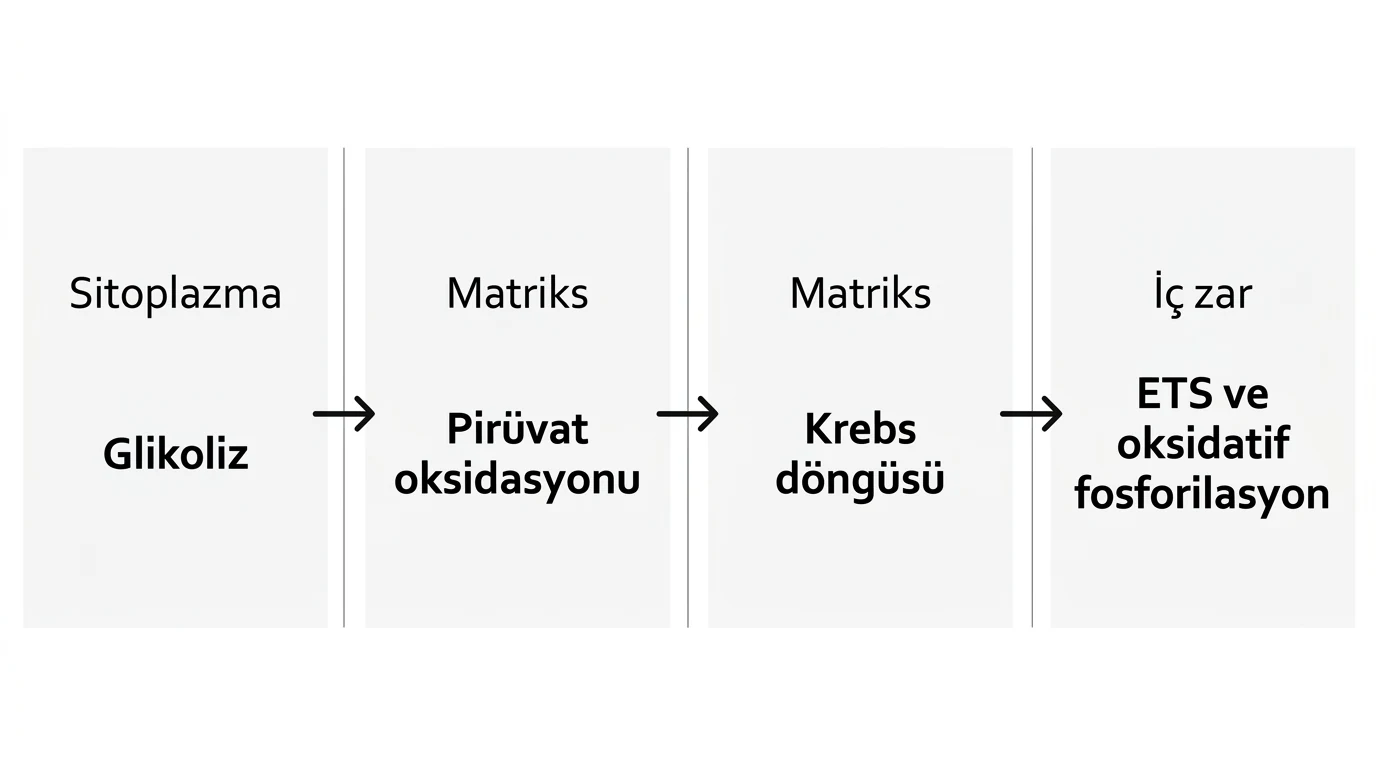
Ökaryotlarda glikoliz sitoplazmada; pirüvat oksidasyonu ve Krebs döngüsü mitokondri matriksinde; ETS ile ATP sentaz etkinliği mitokondrinin iç zarında gerçekleşir. Kristalar iç zarın yüzey alanını artırdığı için çok sayıda ETS kompleksi ve ATP sentazın yerleşmesine olanak verir. Dış zar enerji dönüşümünün esas zarı değildir.
Prokaryotlarda mitokondri bulunmaz. Glikoliz ve döngü tepkimeleri sitoplazmada, ETS ve kemiozmoz hücre zarında yürür. Bu nedenle “ETS varsa mitokondri vardır” önermesi yanlıştır. Solunumun temel mantığı korunur; görev yapan zarın hücresel kimliği değişir.
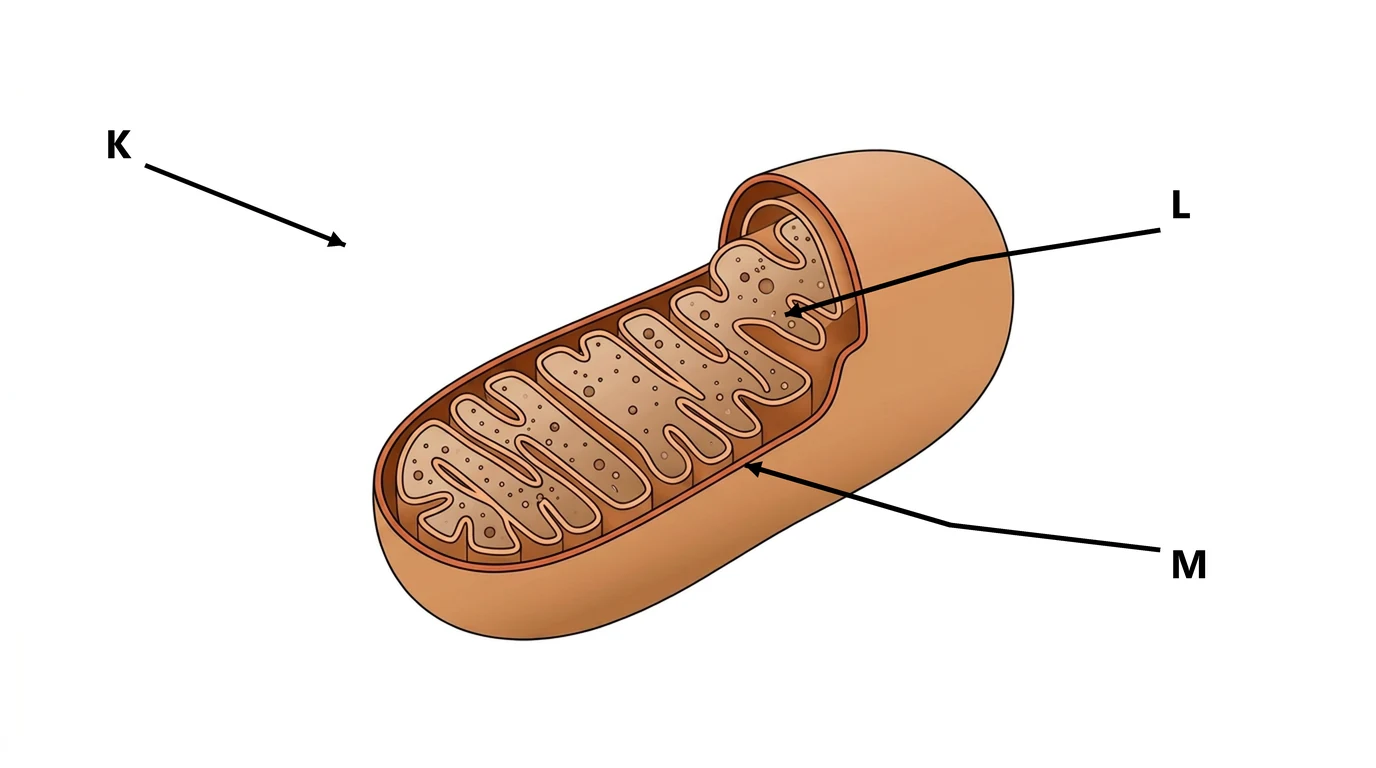
Şekilde K, L ve M bölgeleri gösterilmiştir. Ökaryot bir hücrede glikoliz, Krebs döngüsü ve oksidatif fosforilasyonun gerçekleştiği bölgeler sırasıyla hangisidir?
B) M – L – K
C) K – M – L
D) L – M – K
E) K – L – M
Glikoliz
Enerji Yatırım Evresi
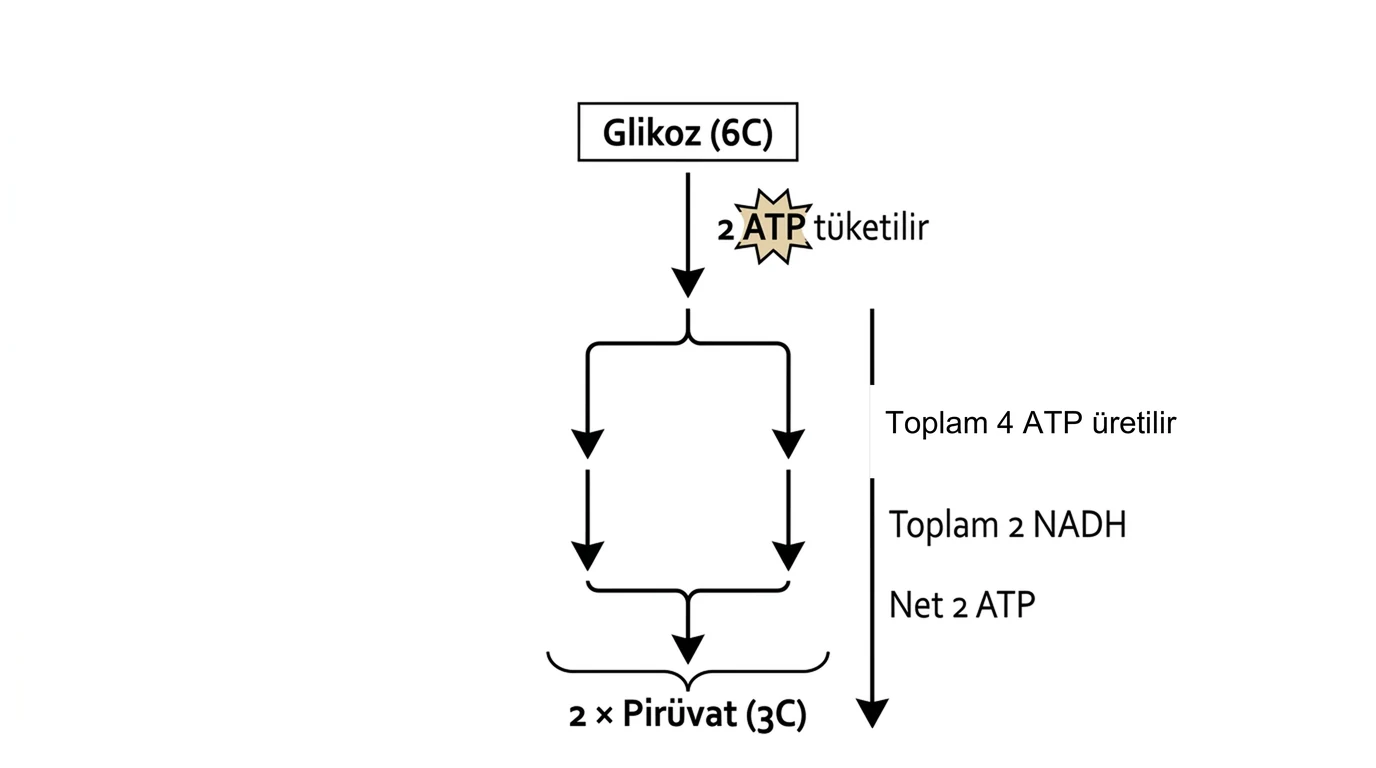
Glikoliz, altı karbonlu glikozun sitoplazmada iki üç karbonlu pirüvata dönüştürülmesidir. Başlangıçta iki ATP harcanarak glikoz iki kez fosforillenir. Fosfat eklenmesi molekülü hücre içinde tutar, tepkimeye daha elverişli hâle getirir ve simetrik olarak bölünebilecek altı karbonlu ara ürüne dönüşmesini kolaylaştırır.
Bu evre ATP tükettiği için ilk bakışta enerji kaybı gibi görünür; ancak sonraki basamaklarda daha fazla ATP üretilebilmesi için zorunlu yatırımdır. Glikolizde moleküler oksijen kullanılmaz, CO₂ çıkışı olmaz ve mitokondri gerekmez.
Altı Karbonlu Molekülün İkiye Ayrılması
Fosforillenmiş altı karbonlu ara ürün iki üç karbonlu moleküle ayrılır. Bundan sonraki bütün tepkimeler bir glikoz için iki kez gerçekleşir. Bir ara basamakta görülen “1 NADH” ya da “2 ATP” ifadesinin tek üç karbonlu kol için mi, yoksa bir glikozun toplamı için mi verildiği mutlaka ayırt edilmelidir.
Karbon sayısı glikoliz boyunca korunur: başlangıçtaki altı karbon, iki adet üç karbonlu pirüvatta bulunur. Bu nedenle glikolizde dekarboksilasyon ve CO₂ çıkışı beklenmez. CO₂ ilk kez pirüvatın asetil-CoA’ya dönüşümünde çıkar.
Enerji Kazanım Evresi ve Substrat Düzeyinde Fosforilasyon
İki üç karbonlu kol yükseltgenirken toplam iki NAD⁺, iki NADH’ye indirgenir. Yüksek enerjili fosfat taşıyan ara ürünlerden ADP’ye doğrudan fosfat aktarılmasıyla toplam dört ATP üretilir. Enzim aracılığıyla bir organik ara üründen ADP’ye doğrudan fosfat aktarılmasına substrat düzeyinde fosforilasyon denir.
Bu ATP üretiminde ETS, proton gradyanı ve ATP sentaz kullanılmaz. Glikolizde iki ATP harcanıp dört ATP üretildiği için net kazanç iki ATP’dir. Bir glikozdan iki pirüvat, iki NADH, net iki ATP ve su oluşur.
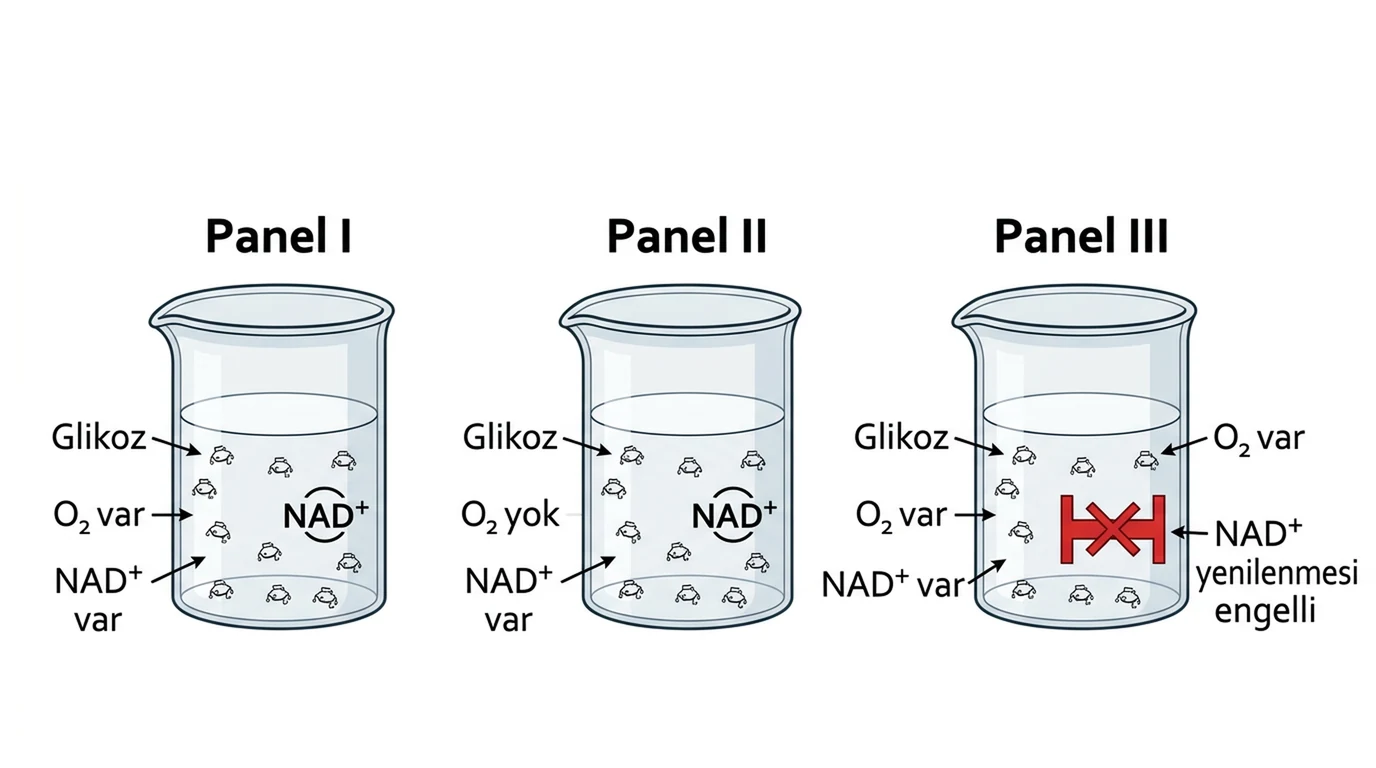
Özdeş sitoplazma özütlerinde diğer koşullar eşittir. Bir süre sonra pirüvat birikiminin I ve II’de benzer, III’te ise kısa süre sonra durduğu gözleniyor. Bu sonuç aşağıdakilerden hangisini destekler?
B) Glikoliz O₂’yi doğrudan kullanmaz; ancak NAD⁺ havuzunun yenilenmesine gereksinim duyar.
C) NAD⁺ glikozun karbon kaynağıdır.
D) III’te ATP sentaz engellendiği için glikoliz durmuştur.
E) Pirüvat yalnız mitokondride oluşur.
B) Yüksek enerjili fosfatın organik ara üründen ADP’ye doğrudan aktarılması
C) FADH₂’nin iç zarda yükseltgenmesi
D) Protonların ATP sentazdan geçmesi
E) CO₂’nin karboksilasyonla bağlanması
Glikolizin Net Bilançosu ve Devam Koşulu
Glikolizin net denklemi kavramsal olarak glikoz + 2 NAD⁺ + 2 ADP + 2 Pi → 2 pirüvat + 2 NADH + 2 H⁺ + 2 ATP + 2 H₂O biçiminde özetlenebilir. Net ATP hesabında üretilen dört ATP’den yatırımda harcanan iki ATP çıkarılır. NADH’nin daha sonra sağlayacağı ATP, glikolizin doğrudan ürününe eklenmez.
Glikolizin devamı için glikoz, enzimler, ADP, Pi ve özellikle oksitlenmiş NAD⁺ gerekir. Oksijenli koşulda NADH elektronlarını ETS’ye aktararak NAD⁺ yenilenmesine katkı verir. Oksijensiz koşulda bu yenilenme anaerobik solunum ya da fermantasyon yollarıyla sağlanabilir.
B) 2 ATP, 1 NADH, 2 CO₂
C) 6 ATP, 2 NADH, 2 pirüvat
D) Net 2 ATP, 2 NADH ve 2 pirüvat
E) Net 4 ATP, 2 FADH₂ ve 2 pirüvat
Pirüvat Oksidasyonu ve Krebs Döngüsü
Pirüvatın Mitokondriye Girişi
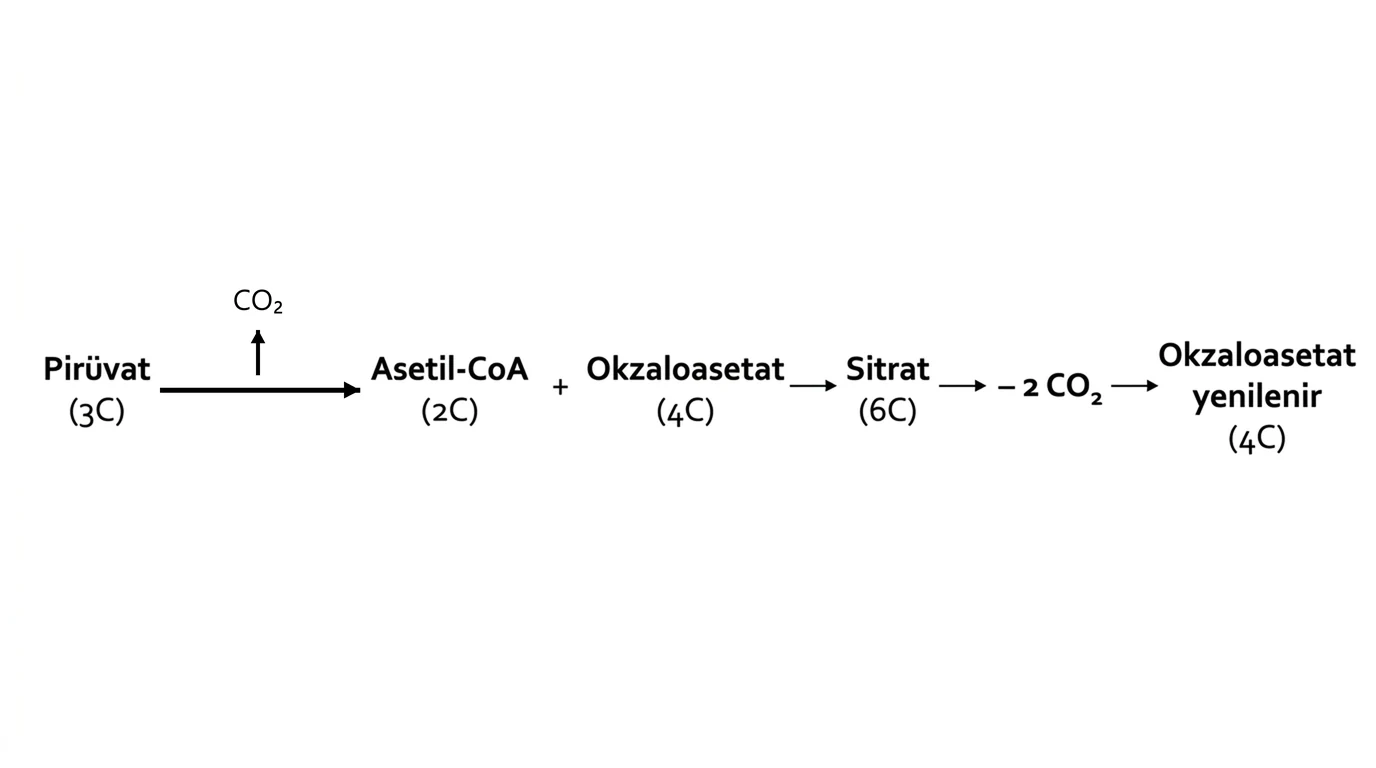
Ökaryotlarda glikoliz ürünü pirüvat mitokondriye taşınır ve matrikste çok enzimli bir kompleks tarafından asetil-CoA’ya dönüştürülür. Bir glikozdan iki pirüvat oluştuğu için bu bağlantı tepkimesi iki kez gerçekleşir. Her pirüvattan bir CO₂ ayrılır, NAD⁺ indirgenir ve kalan iki karbonlu asetil grup koenzim A’ya bağlanır.
Bir glikoz için bağlantı tepkimesinin toplamı iki asetil-CoA, iki CO₂ ve iki NADH’dir. Bu basamakta doğrudan ATP üretilmez. Pirüvatın karbonları ilk kez burada CO₂ olarak kaybedilir.
B) 2 ATP tüketimi ve O₂’nin doğrudan kullanımı
C) 6 karbonun tamamının asetil-CoA’da kalması
D) 2 NADH’nin yükseltgenmesi
E) Toplam 2 CO₂ çıkışı, 2 NADH ve 2 asetil-CoA oluşumu
Krebs Döngüsünün Başlangıcı ve Karbon Takibi
İki karbonlu asetil-CoA, dört karbonlu okzaloasetatla birleşerek altı karbonlu sitratı oluşturur. Koenzim A ayrılır ve tekrar kullanılabilir. Sitrat bir dizi dönüşüm sırasında iki kez dekarboksilasyona uğrar; böylece iki CO₂ çıkar ve karbon iskeleti yeniden dört karbonlu hâle gelir.
Döngünün sonunda okzaloasetat yenilenir; net tüketilmez. Asetil grubunun iki karbonu döngüye girer, ancak ilk turda çıkan CO₂ moleküllerindeki karbonların mutlaka yeni giren asetil grubundan geldiği söylenemez. Karbon atomları ara ürün havuzunda karışabilir.
Krebs Döngüsünün Enerji Ürünleri
Bir asetil-CoA başına Krebs döngüsünde üç NADH, bir FADH₂, bir ATP eşdeğeri ve iki CO₂ oluşur. Bir glikoz iki asetil-CoA verdiği için toplam altı NADH, iki FADH₂, iki ATP ve dört CO₂ elde edilir. ATP, substrat düzeyinde fosforilasyonla üretilir.
Krebs’in asıl enerji değeri doğrudan oluşturduğu az sayıdaki ATP’den çok, ETS’ye elektron taşıyacak NADH ve FADH₂ üretmesidir. Oksijen döngünün hiçbir enzimatik basamağında doğrudan substrat değildir; fakat ETS durursa NAD⁺ ve FAD yenilenemediği için döngü dolaylı olarak yavaşlar.
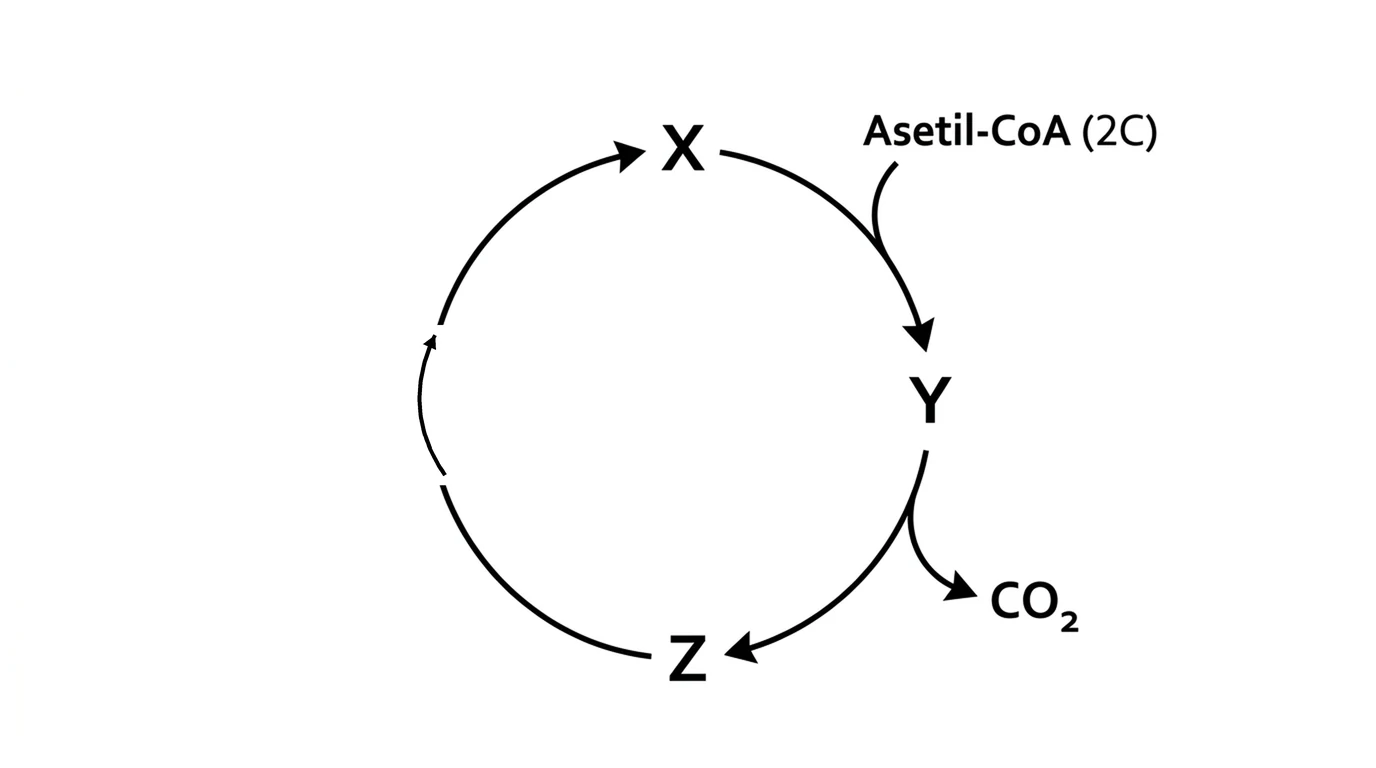
Şemada X ile 2C asetil-CoA birleşerek Y’yi oluşturmakta, Y’den Z’ye geçerken CO₂ çıkmaktadır. Buna göre X, Y ve Z’nin karbon sayıları sırasıyla hangisidir?
B) 6C – 4C – 2C
C) 4C – 6C – 5C
D) 5C – 6C – 4C
E) 4C – 5C – 6C
Okzaloasetatın Yenilenmesi ve Döngü Mantığı
Okzaloasetat, asetil grubunu kabul eden dört karbonlu moleküldür. Döngü sonunda yeniden oluşmadığında yeni asetil-CoA’lar işlenemez. Bu nedenle bir ara ürünün miktarındaki azalma yalnız o basamağın yavaşladığını değil, bütün döngü akışının sınırlandığını gösterebilir.
Krebs ara ürünleri amino asit ve başka moleküllerin sentezinde kullanılabilir. Ara ürünler biyosenteze çekildiğinde hücre onları başka tepkimelerle tamamlar. Solunum, yalnız doğrusal bir “glikoz yakma yolu” değil, anabolik ve katabolik yolların kesiştiği merkezî bir metabolik ağdır.
B) Glikolizde CO₂ çıkışının artması
C) ETS’nin oksijensiz de sınırsız sürmesi
D) FADH₂’nin doğrudan glikoza dönüşmesi
E) Pirüvatın altı karbonlu hâle gelmesi
Elektron Taşıma Sistemi ve Oksidatif Fosforilasyon
ETS Kompleksleri ve Elektron Akışı
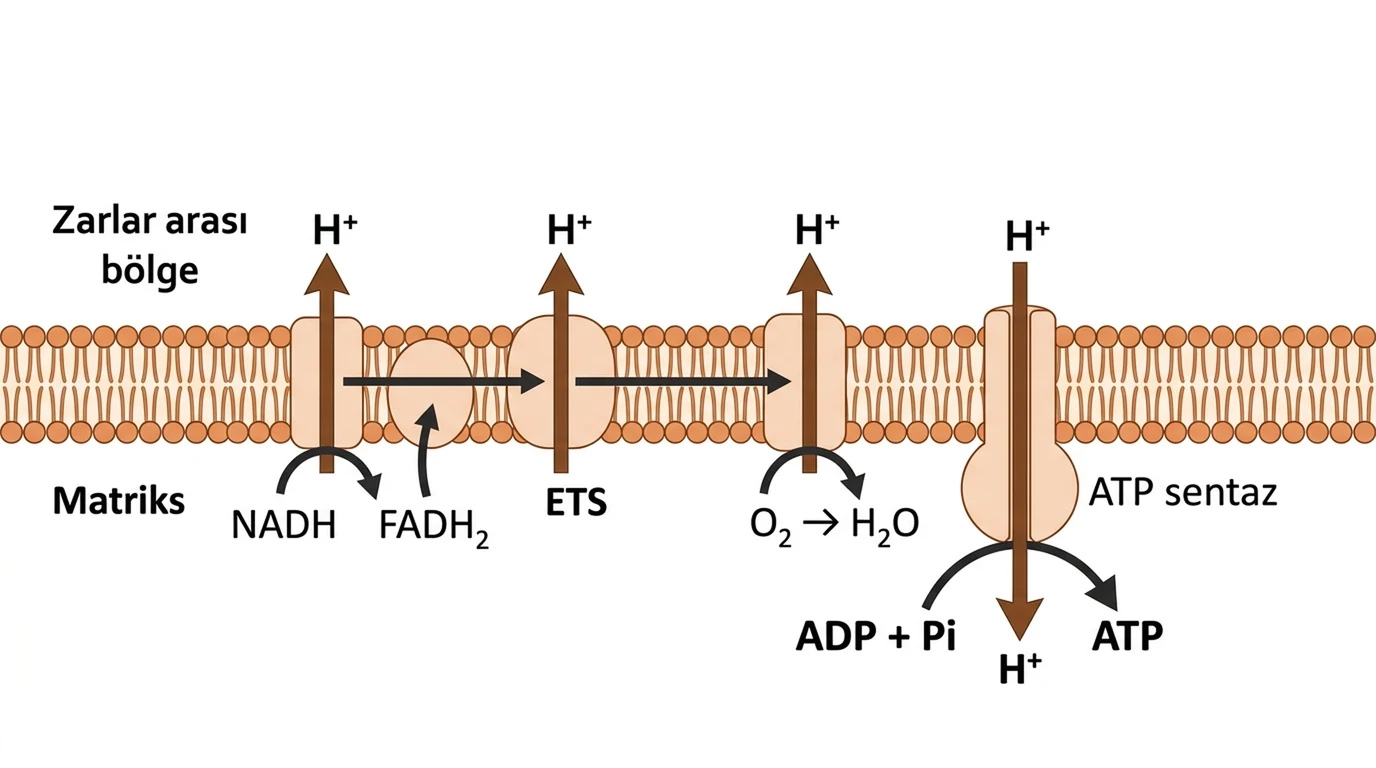
NADH ve FADH₂, yüksek enerjili elektronlarını iç zardaki elektron taşıma elemanlarına verir. Elektronlar giderek daha düşük enerji düzeylerine aktarılırken açığa çıkan enerji belirli komplekslerde protonların matriksten zarlar arası bölgeye pompalanmasında kullanılır. Elektronların kendisi ATP sentazdan geçmez.
NADH elektronlarını daha erken, FADH₂ daha sonraki bir noktadan verir. Elektronlar ETS boyunca ilerler; son basamakta Kompleks IV elektronları oksijene aktarır. Oksijen protonlarla birleşerek su oluşturur. Oksijen elektron akışının başlatıcısı değil, zincirin tıkanmadan sürmesini sağlayan son alıcıdır.
Proton Gradyanı ve Kemiozmoz
Proton pompaları zarlar arası bölgede yüksek H⁺ derişimi ve pozitif yük oluşturur; matriks görece daha düşük H⁺ derişimine ve daha negatif yüke sahip olur. Derişim ve elektriksel yük farklarının toplamına proton itici kuvvet denir. İç zar protonlara büyük ölçüde geçirimsiz olduğu için bu enerji depolanabilir.
Protonların elektrokimyasal gradyan yönünde ATP sentaz kanalından matrikse dönmesine kemiozmoz denir. Proton akışı ATP sentazın yapısal hareketini tetikler ve ADP ile Pi’den ATP sentezlenir. Bu üretim elektron aktarımına bağlı proton gradyanıyla yürüdüğü için oksidatif fosforilasyondur.
B) Matrikste protonlar tamamen yok olur.
C) Substrat düzeyinde fosforilasyon zorunlu olarak artar.
D) Proton gradyanı ve ATP sentezi azalırken elektron akışı bir süre sürebilir.
E) NADH üretimi tümüyle durur.
ATP Sentaz ve Oksijenin Rolü
ATP sentaz proton üretmez; var olan gradyanın enerjisini kullanır. H⁺ zarlar arası bölgeden matrikse dönerken ADP + Pi → ATP tepkimesi gerçekleşir. Zar bütünlüğü bozulduğunda veya ATP sentaz engellendiğinde elektron akışı ile ATP üretimi birbirinden farklı biçimde etkilenebilir.
Oksijen bulunmadığında son taşıyıcı elektronlarını boşaltamaz, zincir indirgenmiş hâlde kalır ve proton pompalanması durur. NADH ile FADH₂ yükseltgenemez; NAD⁺ ve FAD azalınca pirüvat oksidasyonu ile Krebs de dolaylı olarak durur. Oksijenin dolaylı etkisi bu koenzim yenilenmesi üzerinden bütün mitokondri metabolizmasına yayılır.
B) FADH₂ oksijene dönüşür → su tüketilir
C) Glikolizde CO₂ oluşur → pirüvat 6C olur
D) Elektron taşıyıcıları indirgenmiş hâlde birikir → proton pompalanması azalır → oksidatif ATP sentezi durur
E) Okzaloasetat glikoza doğrudan çevrilir
İnhibitörler, Proton Sızıntısı ve Ayrıştırıcılar
Bir ETS kompleksi engellenirse engelin önündeki taşıyıcılar indirgenmiş, sonrasındakiler yükseltgenmiş kalır; elektron akışı, proton pompalama ve oksijen tüketimi azalır. ATP sentaz engellenirse protonlar geri dönemez, gradyan aşırı yükselir ve karşı basınç elektron akışını yavaşlatır.
Ayrıştırıcı maddeler protonların ATP sentaz dışından matrikse dönmesini sağlar. Gradyan zayıfladığı için ATP üretimi azalır; fakat ETS’nin karşı basıncı düştüğünden elektron akışı ve oksijen tüketimi artabilir. Enerjinin daha büyük bölümü ısıya dönüşür. Bu durum “oksijen tüketimi artarsa ATP mutlaka artar” genellemesini çürütür.
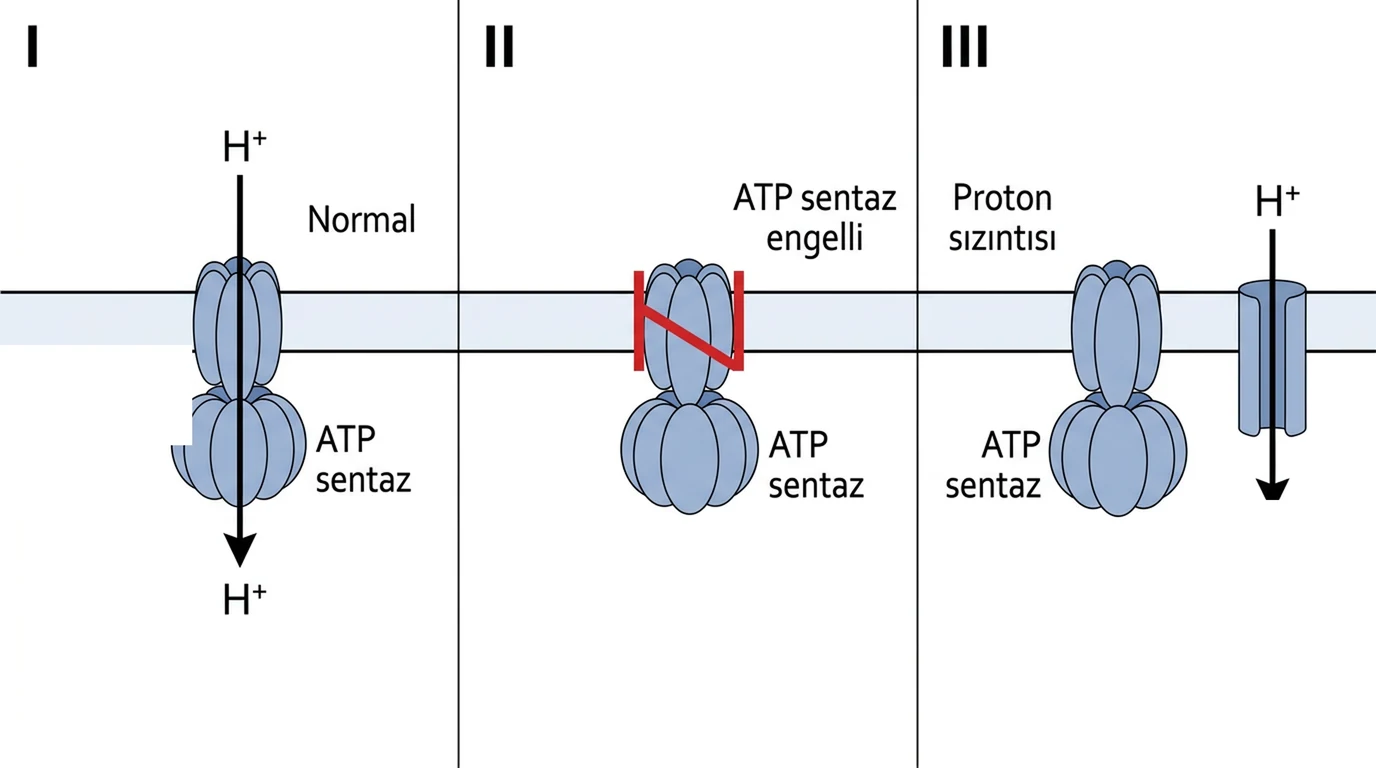
I normal, II ATP sentazı engelli, III ise ATP sentazı sağlam fakat proton sızıntı kanalı taşıyan mitokondrileri göstermektedir. Substrat ve O₂ yeterliyken hangi karşılaştırma doğrudur?
B) II ve III’te ATP üretimi kesinlikle normalden yüksektir.
C) III’te protonlar yalnız ATP sentazdan geçer.
D) II’de oksijen son alıcı olmaktan çıkar.
E) I’de proton gradyanı oluşmaz.
B) Suyun fotolizle parçalanması
C) Oksijen tüketiminin azalması, NADH’nin birikmesi ve proton pompalanmasının durması
D) Glikolizde FADH₂ üretiminin artması
E) ATP sentazın substrat düzeyinde ATP üretmesi
B) Protonların ATP sentaz dışından matrikse dönerek gradyanı dağıtması
C) Oksijenin glikolizde parçalanması
D) Krebs döngüsünün sitoplazmaya taşınması
E) ATP’nin elektron alıcısı olması
Metabolik Kontrol ve Enerji Gereksinimi
Hücre ATP düzeyi yükseldiğinde glikoliz ve Krebs’in bazı kilit enzimleri baskılanabilir; ADP ve AMP arttığında enerji üretim yolları uyarılabilir. Böylece yakıt, gereksinim yokken aynı hızla tüketilmez. Düzenleme tek bir enzime değil, substrat bulunabilirliği, ürün birikimi, koenzim oranları ve hormonlara bağlı bir ağdır.
Kas etkinliği arttığında ATP hızla tüketilir, ADP ve Pi artar; oksijen ve yakıt yeterliyse solunum hızı yükselir. Bununla birlikte bir basamağın hızlanması bütün basamakların sınırsız hızlanacağı anlamına gelmez. Oksijen, substrat, enzim kapasitesi veya zar yüzeyi sınırlayıcı olabilir.
Bir Glikozun Bilançosu ve Atom Takibi
Karbon, Koenzim ve ATP Bilançosu
Bir glikoz için glikoliz net 2 ATP ve 2 NADH; pirüvat oksidasyonu 2 NADH ve 2 CO₂; Krebs döngüsü 2 ATP, 6 NADH, 2 FADH₂ ve 4 CO₂ üretir. Böylece substrat düzeyinde toplam 4 ATP, ETS’ye taşınan toplam 10 NADH ve 2 FADH₂, karbon ürünü olarak toplam 6 CO₂ oluşur.
Elektron taşıma ve kemiozmoz ökaryot hücrelerde yaklaşık 26 ya da 28 ATP sağlayabilir. Toplam verim çoğunlukla yaklaşık 30 ya da 32 ATP olarak verilir. Bu sayı kesin evrensel bir sabit değildir; sitoplazmik NADH elektronlarının mitokondriye aktarım yolu ve zar kaçakları verimi değiştirebilir.
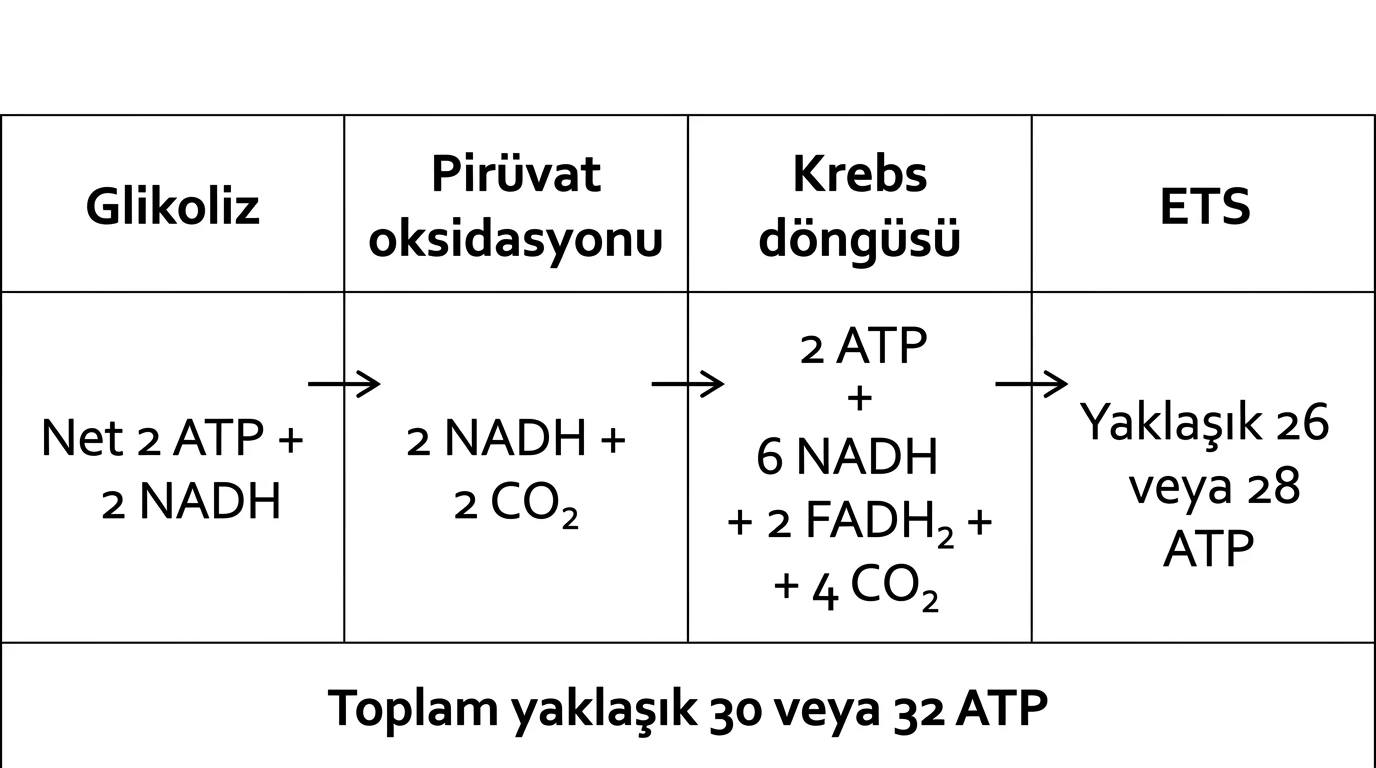
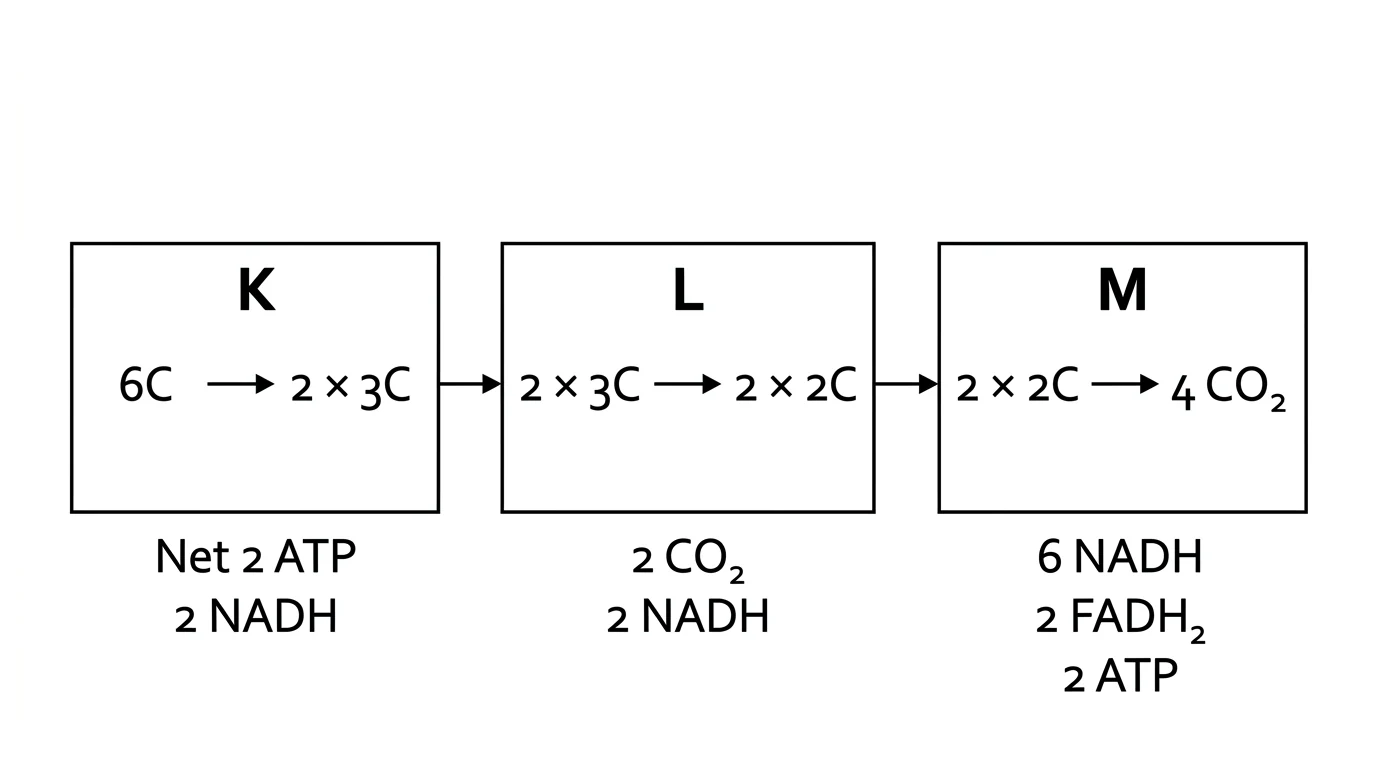
Şemadaki K, L ve M evreleri sırasıyla hangileridir?
B) Glikoliz – Krebs – ETS
C) ETS – glikoliz – Krebs
D) Pirüvat oksidasyonu – glikoliz – Krebs
E) Glikoliz – pirüvat oksidasyonu – Krebs
Neden 30 ya da 32 ATP?
Glikolizde oluşan NADH sitoplazmadadır; iç mitokondri zarı NADH’yi doğrudan geçirmez. Elektronlar taşıma sistemleriyle matriksteki NAD⁺ ya da FAD’a aktarılır. Elektronların NADH düzeyinde ya da FADH₂ düzeyinde ETS’ye verilmesi toplam ATP verimini yaklaşık iki ATP değiştirebilir.
Ayrıca proton sızıntısı, mitokondri içine madde taşınması ve hücresel bakım işleri teorik enerjinin tamamının ATP’ye bağlanmasını engeller. Bu nedenle eski “36–38 ATP kesin oluşur” genellemesi yerine modern ve koşula bağlı yaklaşık 30–32 ATP yaklaşımı kullanılmalıdır.
B) Oksijen yalnız bir hücrede karbon kaynağıdır.
C) Birinde Krebs sitoplazmada gerçekleşir.
D) Elektronların ETS’ye NADH ya da FADH₂ düzeyinden girmesi pompalanan proton sayısını değiştirir.
E) ATP sentaz substrat düzeyinde çalışır.
Oksijen, Karbon ve İzotop İzleme
Solunumda glikozun karbonları pirüvat oksidasyonu ve Krebs’te CO₂’ye dönüşür. Solunan moleküler O₂ ise ETS’nin sonunda elektron ve proton alarak büyük ölçüde suyun oksijenine katılır. Bu nedenle atmosferik işaretli O₂’nin hemen CO₂’de görülmesi beklenmez.
Glikozun oksijen atomları ve hücresel suyun oksijenleri ara tepkimelerde yer değiştirebilir. İzotop sorularında “hangi atom hangi moleküle ilk ve doğrudan geçer?” sorusu, uzun süreli denge ve değişimlerden ayrılmalıdır. O₂’nin doğrudan indirgenme ürünü sudur; CO₂’nin karbonu organik yakıttan gelir.
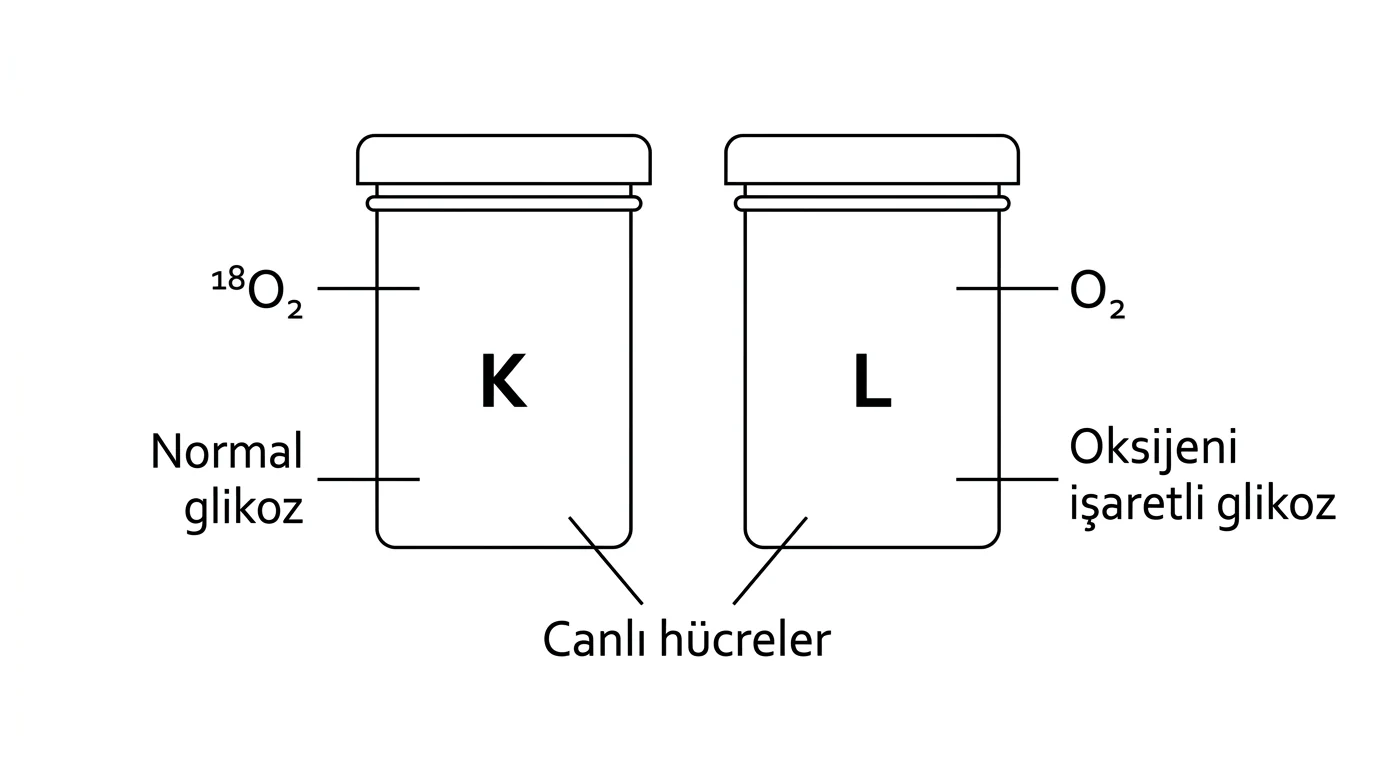
K kabında ¹⁸O₂ ve normal glikoz; L kabında normal O₂ ve oksijen atomları işaretli glikoz vardır. Kısa süreli doğrudan ürün takibinde hangi sonuç beklenir?
B) L’de işaret yalnız ATP’nin fosfatında bulunur.
C) Her iki kapta moleküler O₂ glikozun karbonuna dönüşür.
D) K’de işaretli oksijen öncelikle H₂O’da; L’de glikoz kaynaklı işaret karbonlu ürünler ve su havuzunda izlenebilir.
E) K’de işaretli oksijen yalnız pirüvatta kalır.
Solunumda Suyun Oluşumu ve Kullanımı
Oksijenli solunumun toplu denkleminde su ürün olarak gösterilir; çünkü ETS’nin sonunda O₂ elektron ve proton alarak suya indirgenir. Bununla birlikte glikoliz ve Krebs’in bazı ara basamaklarında su tüketilebilir ya da oluşabilir. Toplu net denklem, bütün ara tepkimelerdeki su alışverişlerinin cebirsel sonucudur.
Bu nedenle yalnız bir ara basamakta su görülmesi, oksijenin o basamakta doğrudan kullanıldığı anlamına gelmez. Moleküler O₂’nin doğrudan tüketildiği temel yer ETS’nin sonudur; atom izleme sorularında ara su havuzları ve izotop değişimleri ayrıca dikkate alınır.
Besinlerin Hücresel Solunuma Katılması
Karbonhidratların Girişi
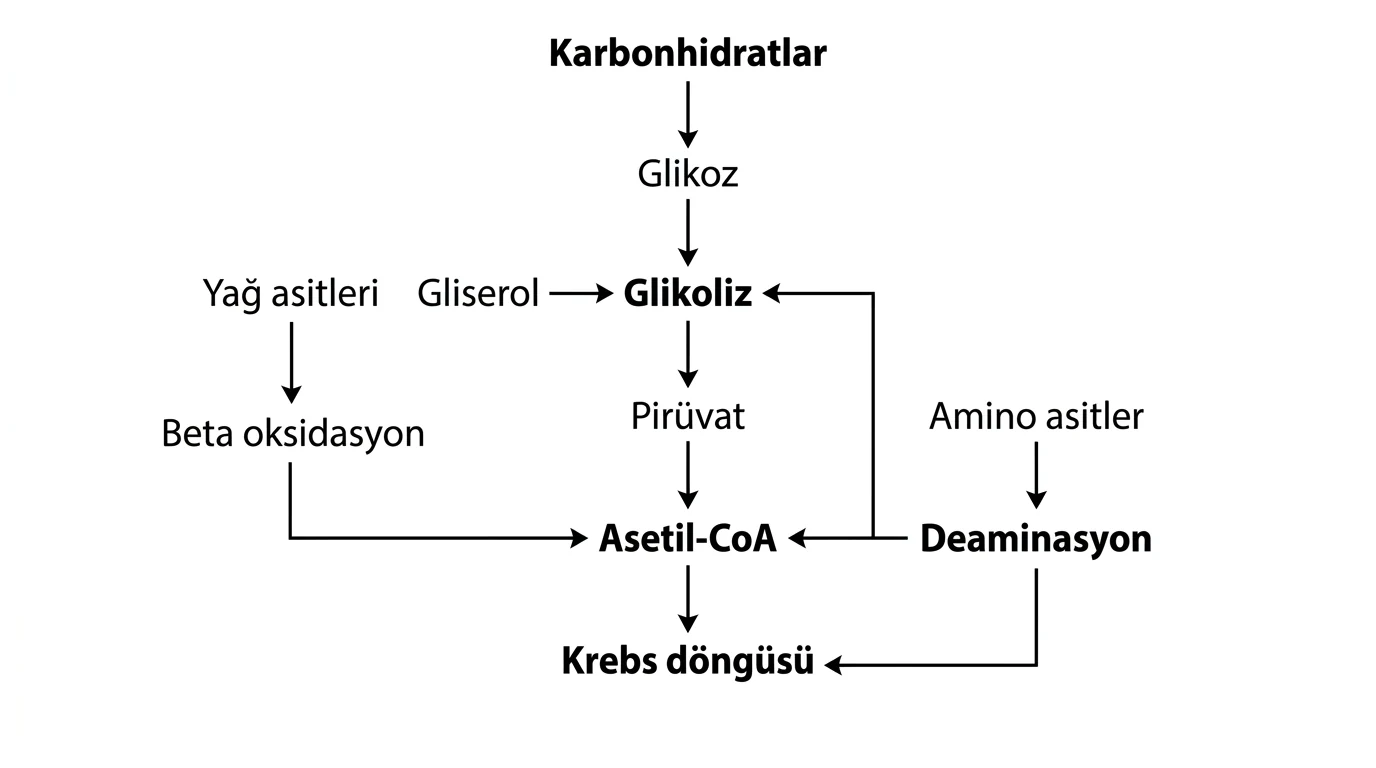
Nişasta ve glikojen gibi polisakkaritler hidrolizle monosakkaritlere ayrılır. Glikoz doğrudan glikolize girer; galaktoz ve fruktoz uygun ara ürünlere dönüştürüldükten sonra glikolize katılabilir. Bu nedenle farklı karbonhidratlar aynı merkezî yolu kullanabilir; ancak hazırlık basamakları ve enerji maliyetleri aynı olmayabilir.
Karbonhidratların fazlası glikojen ya da yağa dönüştürülebilir. Ters yönde, bazı glikoliz ve Krebs ara ürünleri glikoz sentezine de katılabilir. Metabolik yollar tek yönlü borular değil, enzimlerle düzenlenen kavşaklardır.
Yağların Girişi ve Yüksek Enerji Verimi
Trigliseritler gliserol ve yağ asitlerine ayrılır. Gliserol dönüştürüldükten sonra glikolizin bir ara basamağına katılır. Yağ asitleri ise mitokondride beta oksidasyona uğrar; iki karbonlu asetil-CoA birimleri, NADH ve FADH₂ oluşturur. Asetil-CoA Krebs’e, indirgenmiş koenzimler ETS’ye gider.
Yağlar karbon başına daha fazla hidrojen ve yüksek enerjili elektron taşıdığı için gram başına karbonhidratlardan daha fazla ATP sağlar. Ancak yağ asitleri doğrudan glikoza ya da glikolize girmez; beta oksidasyonla asetil-CoA’ya dönüştürülür.
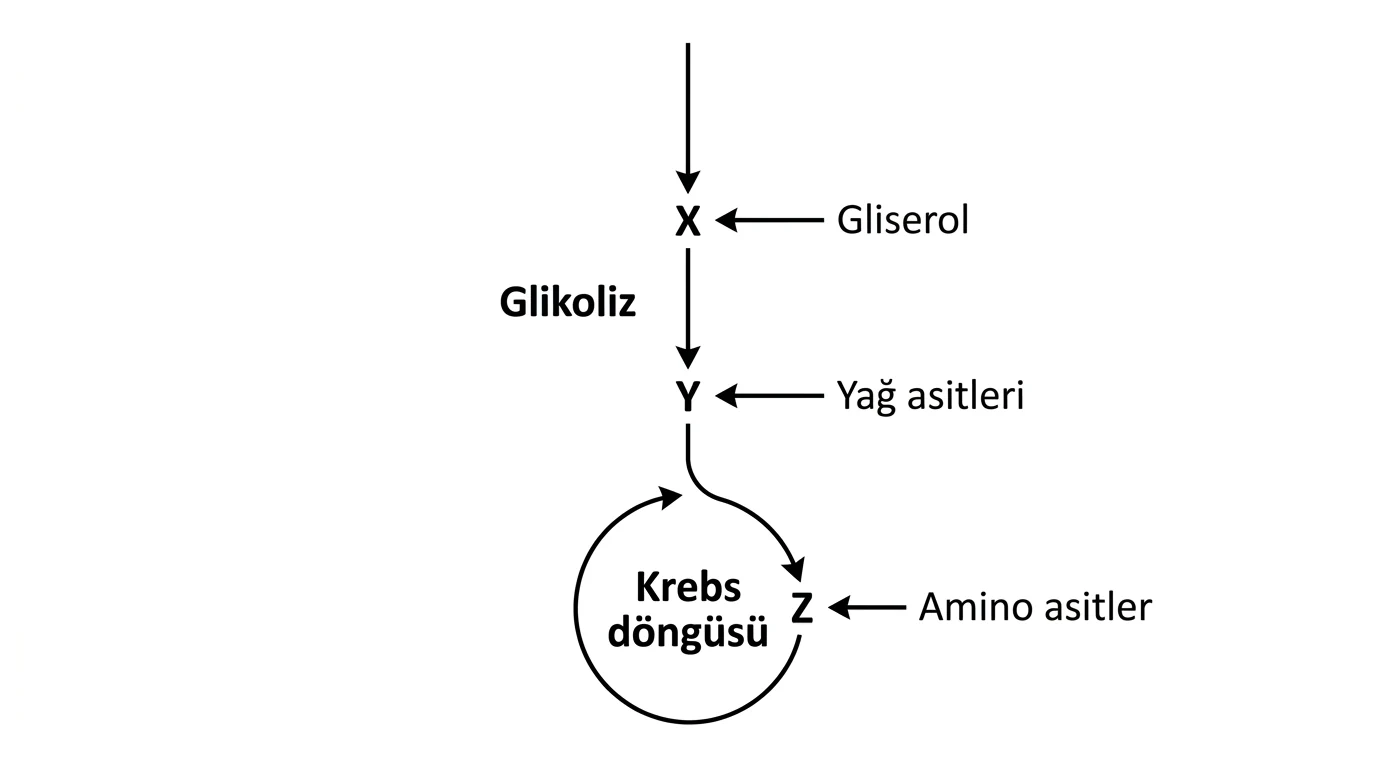
Şemada gliserol X’e, yağ asitleri Y’ye, amino asit karbon iskeletleri Z’ye katılmaktadır. Buna göre X, Y ve Z için aşağıdaki eşleştirmelerden hangisi uygundur?
B) Glikoliz ara ürünü – asetil-CoA – Krebs ara ürünü
C) Krebs ara ürünü – pirüvat – NADH
D) O₂ – glikoliz ara ürünü – ATP sentaz
E) Laktat – etanol – asetaldehit
B) Yağ asitlerinin ETS kullanmaması
C) Karbonhidratların hiç NADH üretmemesi
D) Yağ asitlerinin son elektron alıcısı olması
E) Beta oksidasyonda oksijen üretilmesi
Proteinlerin Girişi ve Deaminasyon
Proteinler amino asitlere hidroliz edilir. Amino grubunun uzaklaştırılmasına deaminasyon denir. Azotlu kısım toksik amonyağa ve ardından canlı grubuna göre üre, ürik asit ya da başka azotlu atıklara dönüştürülebilir. Geriye kalan karbon iskeleti pirüvat, asetil-CoA veya Krebs ara ürünlerine çevrilerek enerji metabolizmasına katılır.
Proteinler öncelikle yapım, onarım, enzim ve düzenleyici molekül sentezinde kullanılır; uzun açlık ya da gereksinim durumunda enerji kaynağı olabilir. Amino asitlerden ATP elde edilmesi, azotlu atık oluşması nedeniyle karbonhidrat ve yağ kullanımından farklıdır.
B) Karbon iskeletinin uygun ara ürüne çevrilmesi
C) Glikolizin baştan sona çalışması
D) Azotlu atık oluşumuna giden bir yol
E) Krebs ve ETS üzerinden enerji kazanımı olasılığı
Anaerobik Solunum
ETS Vardır, Oksijen Son Alıcı Değildir
Anaerobik solunum çoğunlukla bazı bakteri ve arkelerde görülür. Organik ya da inorganik elektron vericilerden alınan elektronlar bir ETS boyunca taşınır; proton gradyanı ve oksidatif fosforilasyonla ATP üretilebilir. Son elektron alıcısı O₂ yerine nitrat, sülfat, karbonat ya da başka bir moleküldür.
Oksijenin elektron ilgisi birçok alternatif alıcıdan yüksek olduğu için aerobik solunum çoğunlukla daha yüksek enerji verimi sağlar. Ancak anaerobik solunumun ATP verimi fermantasyondan genellikle yüksektir; çünkü ETS ve kemiozmoz kullanılır.
Son Elektron Alıcıları ve Madde Döngüleri
Nitratın indirgenmesi denitrifikasyonda N₂ gibi ürünlere, sülfatın indirgenmesi H₂S oluşumuna katkı sağlayabilir. Bu tepkimeler azot ve kükürt döngülerinin önemli parçalarıdır. Son alıcının türü, elektronların aktarımı sırasında açığa çıkan enerji miktarını ve dolayısıyla pompalanabilen proton ile sentezlenebilen ATP miktarını etkiler.
Bir ürünün görülmesi tek başına yolu belirlemeye yetmeyebilir; ETS varlığı, son alıcının dışarıdan alınması ve oksidatif fosforilasyon kanıtları birlikte değerlendirilmelidir.
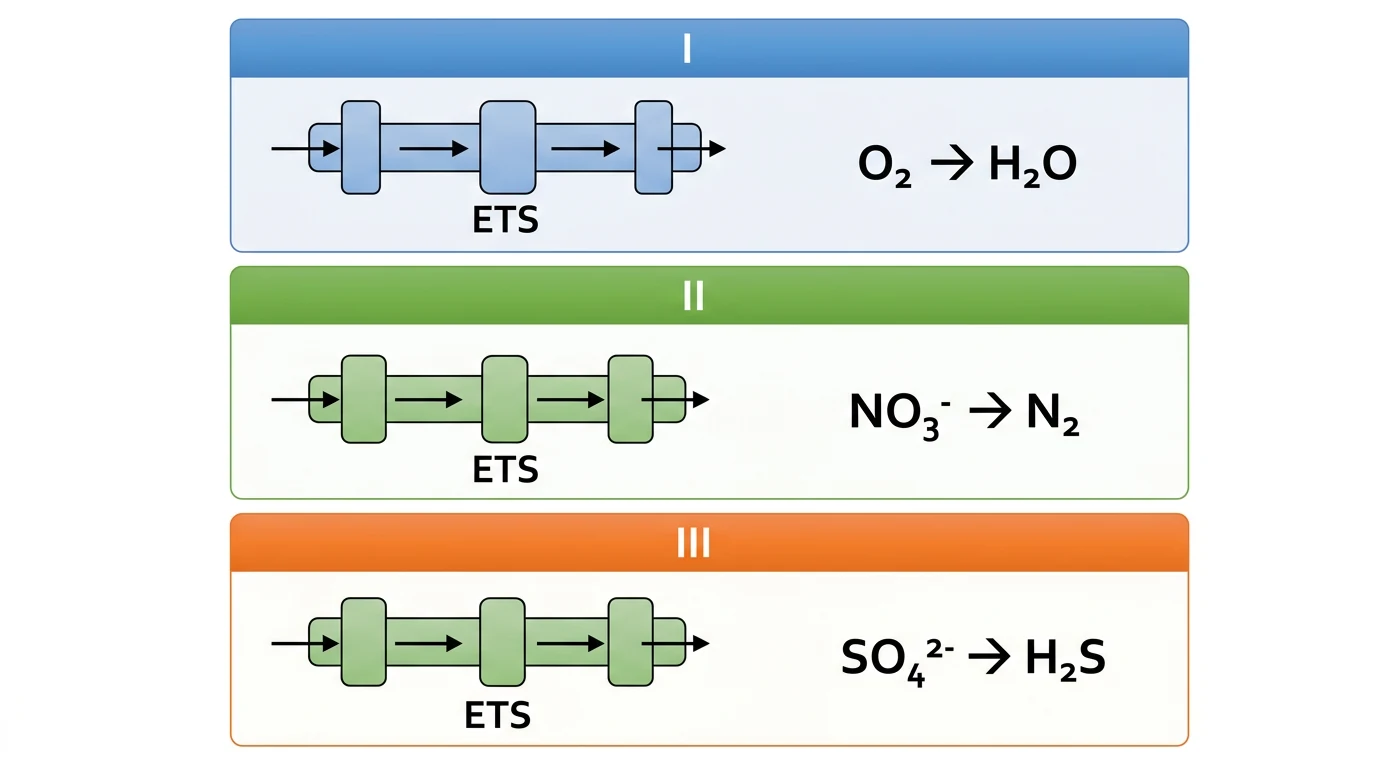
Üç sistemde elektron vericisi ve ETS eleman sayısı özdeş kabul ediliyor. Son alıcıların elektron ilgisi O₂ > NO₃⁻ > SO₄²⁻ sırasındaysa beklenen ATP verimi sıralaması hangisidir?
B) II > I > III
C) I = II = III
D) III > I > II
E) I > II > III
Anaerobik Solunum ile Fermantasyonun Ayrılması
Her iki yol da oksijensiz ortamda çalışabilir ve glikolizle başlayabilir. Anaerobik solunumda ETS, zar üzerinde proton gradyanı ve dışsal bir son elektron alıcısı vardır. Fermantasyonda ETS yoktur; pirüvat ya da türevi organik son alıcı olur ve temel amaç NADH’yi NAD⁺’ye çevirerek glikolizi sürdürmektir.
Anaerobik solunumda substrat düzeyinde fosforilasyona ek olarak oksidatif fosforilasyon görülebilir. Fermantasyonda ATP yalnız glikolizden gelir. Bu nedenle “oksijen yoksa 2 ATP oluşur” ifadesi ancak fermantasyon için uygun bir genellemedir; anaerobik solunum daha fazla ATP sağlayabilir.
B) L’de nitrat son elektron alıcısıdır.
C) K fermantasyon, L aerobik solunum yapar.
D) Her ikisinde de O₂ zorunludur.
E) K anaerobik solunum; L fermantasyon yapmaktadır.
B) DNA eşlenmesi sırasında baz eşleşmesi
C) Protein sentezinde peptit bağı kurulması
D) Son elektron aktarımı ve buna bağlı koenzim yenilenmesi
E) Suyun fotolizi
Fotosentez–Solunum İlişkisi ve Sistem Soruları
Kloroplast ile Mitokondri Arasındaki Madde Akışı
Fotosentez organik madde ve O₂ üretirken hücresel solunum organik madde ile O₂’yi kullanıp CO₂ ve H₂O oluşturabilir. Toplu denklemler birbirinin tersi gibi görünse de olayların enzimleri, bölmeleri ve enerji dönüşüm yönleri farklıdır. Fotosentez ışık enerjisini kimyasal bağlarda depolar; solunum bu enerjinin bir bölümünü ATP’ye aktarır.
Bitki hücreleri hem fotosentez hem solunum yapar. Kloroplast yalnız ışıkta net organik madde üretirken mitokondri gündüz ve gece solunumu sürdürebilir. Fotosentez hızı solunum hızını aşarsa net CO₂ tüketimi ve O₂ üretimi; eşitse gaz alışverişinde denge görülür.
B) Işıkta ve karanlıkta 18 birim O₂ üretilir.
C) Işıkta net 11 birim CO₂ tüketimi; karanlıkta 7 birim CO₂ üretimi beklenir.
D) Işıkta net 25 birim CO₂ tüketilir.
E) Solunum yalnız kloroplastta gerçekleşir.
Kompanzasyon Noktası ve Net Gaz Değişimi
Işık kompanzasyon noktasında fotosentezle tüketilen CO₂ ve üretilen O₂, solunumla üretilen CO₂ ve tüketilen O₂’ye eşittir. Net gaz değişimi sıfırdır; ancak her iki metabolik yol da sürmektedir. Kompanzasyon noktası “ATP üretimi yok” ya da “bitki metabolizması durdu” anlamına gelmez.
Işık şiddeti kompanzasyon noktasının altındaysa solunum baskındır ve organik madde rezervi azalır. Üstündeyse net organik madde birikimi mümkündür. Gölge ve güneş bitkilerinin kompanzasyon noktaları farklı olabilir.
B) Net gaz değişimi sıfır olsa da fotosentez ve solunum eşit hızda sürüyor olabilir.
C) Yalnız fermantasyon gerçekleşmektedir.
D) Kloroplast ATP üretmiyordur.
E) Mitokondri yok olmuştur.
Bütünleşik Deney ve Grafik Yorumlama
B) Üç grupta da ATP ve O₂ tüketimi aynı oranda artar.
C) L’de proton gradyanı zorunlu olarak yükselir.
D) M’de ATP sentaz engeli substrat düzeyinde fosforilasyonu artırır.
E) K’da NADH hızla azalır.